长度长新生RNA测序是一种将严格新生RNA纯化与纳米孔直接RNA测序相结合的长读长新生RNA分析技术。它在单分子水平直接测定天然RNA分子的完整序列信息:每条read既携带RNA聚合酶II(Pol II)的实时转录位置(read 3′端),又完整记录该分子上每个内含子的剪接状态,从而在"转录正在发生的现场"直接观察RNA剪接的动力学、顺序与协同模式,是研究共转录RNA加工(剪接、3′端加工等)的独特工具。
核心原理是"双重新生RNA富集 + 直接RNA测序":
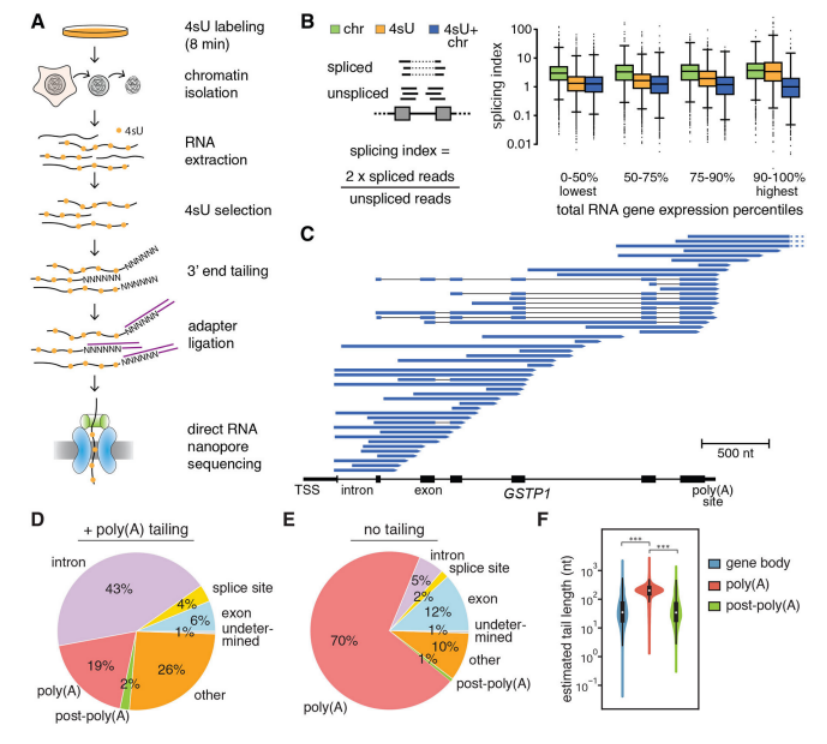
1. 双重新生RNA富集。新生RNA仅占细胞总RNA的不到0.5%,且成熟剪接RNA的微量污染就会高估共转录剪接水平。联合两种互补的富集策略可提高新生RNA纯度:①4-硫尿苷(4sU)代谢标记——细胞在含4sU的培养基中短期标记,4sU仅在标记窗口内掺入正在合成的新生RNA;②细胞分级分离——裂解细胞后经离心获得染色质组分,回收与染色质结合的、尚处于转录现场的RNA。随后对4sU进行生物素化反应,经链霉亲和素磁珠亲和选择获得4sU标记的染色质关联RNA(4sU-chr RNA)。
2. 3′端酶加尾及直接RNA测序。用大肠杆菌poly(A)聚合酶对纯化RNA的3′端进行体外酶加尾,连接测序接头并进行cDNA链合成(cDNA不测序,仅用于减少RNA二级结构、提高过孔通量),进行纳米孔测序。
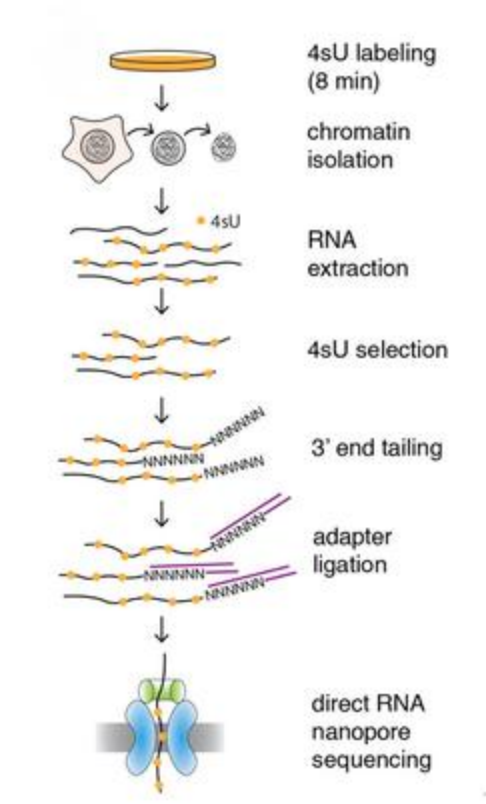
实验流程:
1. 4sU代谢标记与收获:细胞在500 μM 4sU中脉冲标记8分钟,标记完成后立即收集细胞;
2. 细胞分级分离:低温条件下依次裂解细胞膜与核膜,经蔗糖垫离心分离细胞质、核质与染色质组分,回收染色质沉淀;
3. 染色质关联RNA提取:Qiazol法提取染色质组分RNA,DNase I处理去除基因组DNA;
4. 4sU生物素化与亲和选择:EZ-Link Biotin-HPDP标记4sU,经链霉亲和素磁珠选择、DTT洗脱,获得4sU标记新生RNA;
5. rRNA去除:RiboMinus去除核糖体RNA,避免rRNA reads占据纳米孔测序通量;
6. 3′端加尾:以E. coli poly(A)聚合酶加poly(A)尾,为新生RNA提供测序接头结合位点;
7. 接头连接与文库构建:连接splinted测序接头,cDNA链合成以减少RNA二级结构,RNAClean XP磁珠两轮纯化后上样;
8. 纳米孔测序与数据分析:MinION/PromethION测序,碱基识别后将RNA序列转换为DNA序列,以minimap2 -ax splice模式比对参考基因组,开展下游分析。
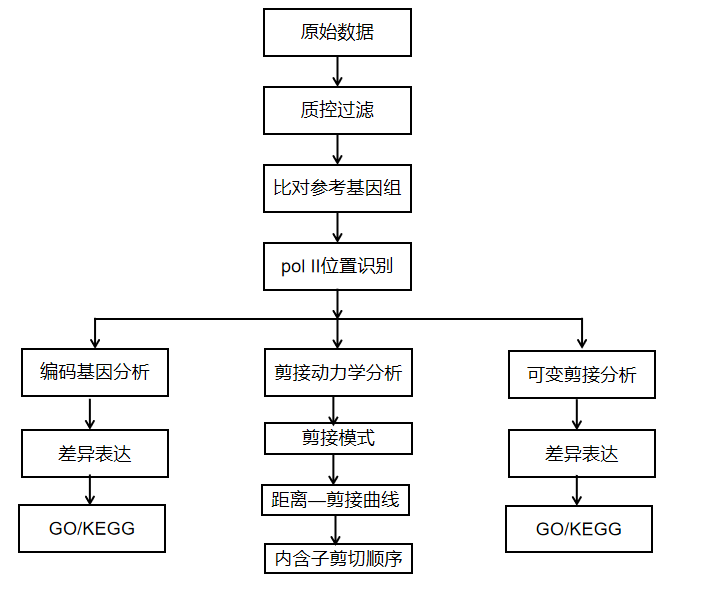
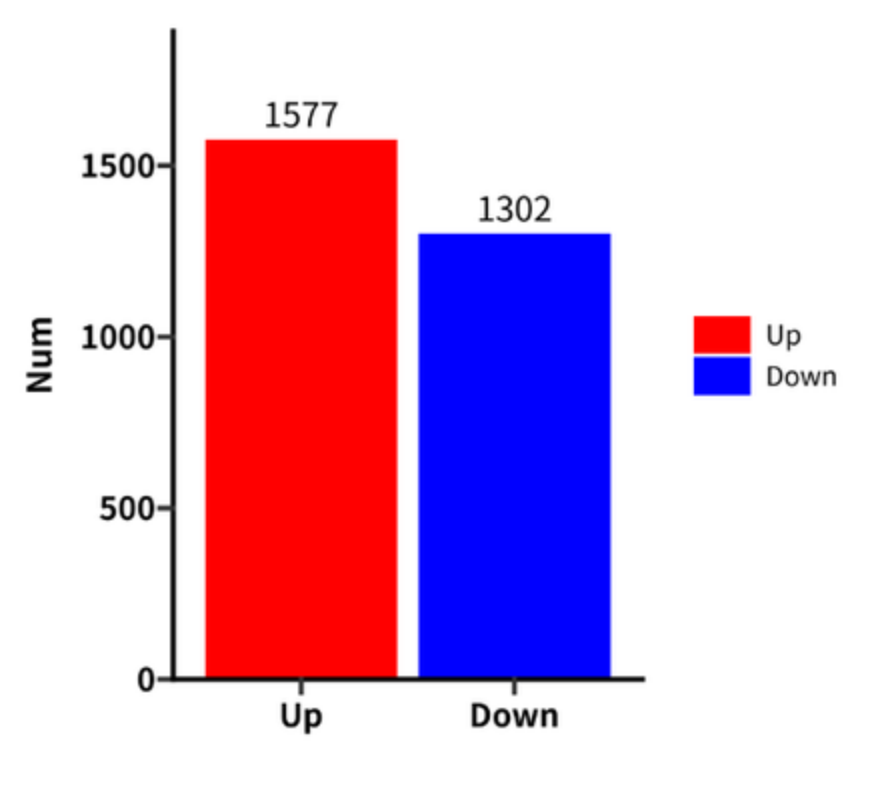
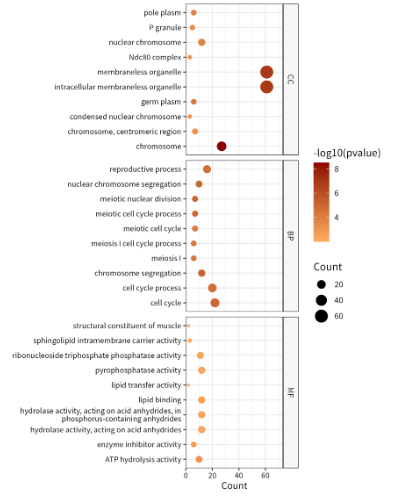
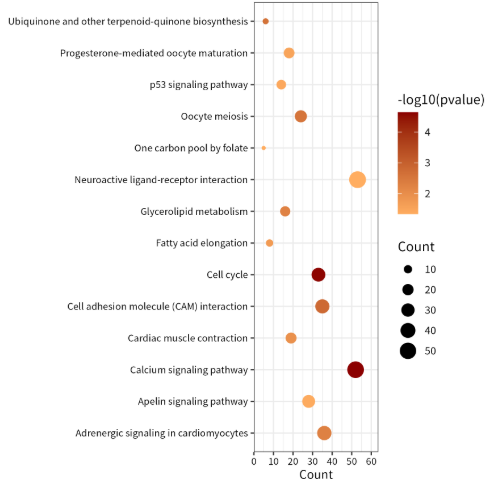
1. 编码基因表达分析及差异:对编码基因进行长reads计数与表达定量,分析样本间相关性,筛选组间差异表达基因并开展GO/KEGG功能富集分析;
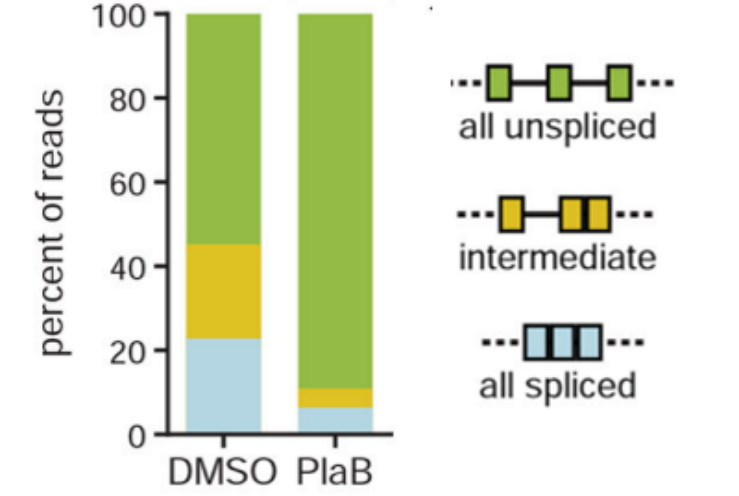
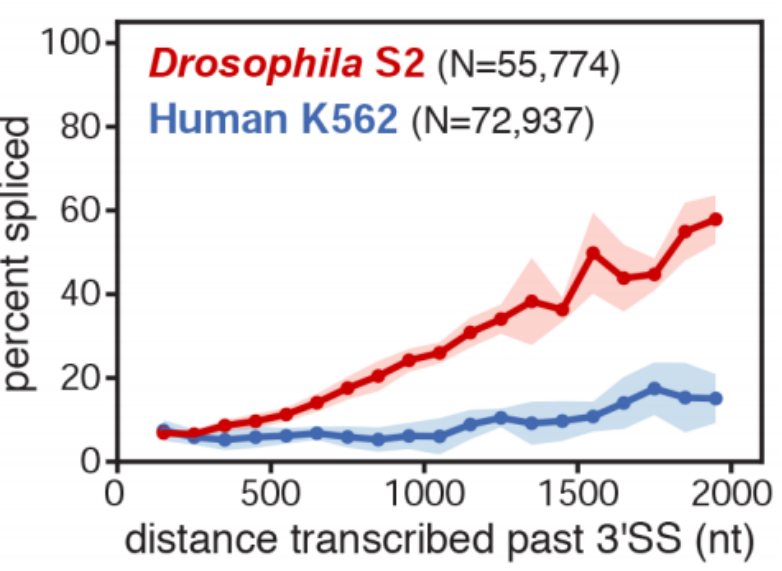
2. 共转录剪接分析:基于已有内含子注释,在单分子水平判定每个内含子的剪接状态(已剪接/未剪接),绘制"转录-剪接距离"曲线(剪接完成时Pol II越过内含子3′剪接位点的距离),分析内含子对的剪接顺序,比较组成型剪接与可变剪接内含子的动力学差异;
1. 共转录剪接动力学研究:直接测量剪接完成与转录延伸的物理距离,解析转录与剪接的空间耦合关系;
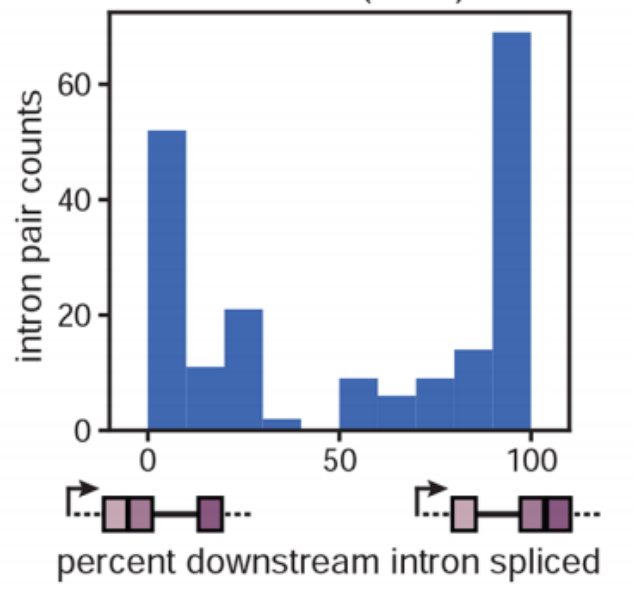
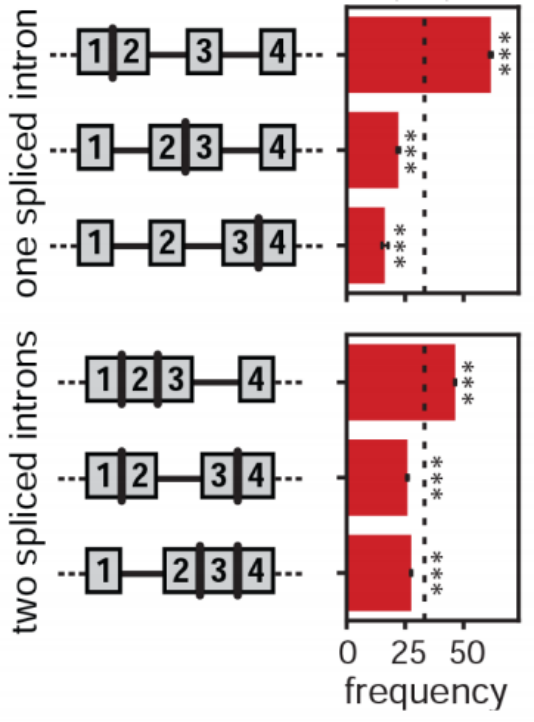
2. 剪接顺序与协同性分析:判定多个内含子的剪接是否遵循转录顺序("先到先剪")或呈现既定顺序,揭示邻近内含子的协同剪接规律;
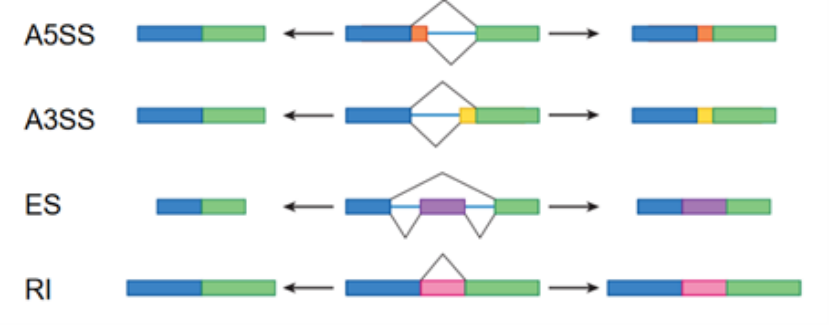
3. 可变剪接的共转录调控:分析可变剪接外显子邻近内含子的剪接时序差异,揭示可变剪接决策的时间窗口;
1. 直接RNA测序,无反转录、无PCR扩增:read序列即天然RNA分子,彻底避免cDNA文库制备的长度与剪接状态偏好;
2. 单分子多内含子异构体信息:单条read可跨越多个内含子,短读长测序无法实现的剪接顺序与协同性分析成为可能;
3. 双重新生RNA富集:4sU代谢标记+染色质分级分离联用,未剪接pre-mRNA富集效率显著高于任一单独方法,成熟RNA污染降至最低;
4. Pol II位置与剪接状态同步读取:单条read同时报告"转录到哪里"与"哪些内含子已剪接",直接建立转录-剪接的物理关联;
1. 实验流程自主研发,新生RNA双重富集体系稳定,有效捕获染色质关联新生RNA;
2. 纳米孔直接RNA测序平台运行经验丰富,从加尾、接头连接到流动芯片上样全流程质控;
3. 分析体系完善,涵盖编码基因表达与差异、共转录剪接动力学、剪接顺序与协同性等长读长特色分析内容;
4. 文章级全流程服务,包括一对一方案讨论及制定、检测数据解读、个性化分析、验证方案、审稿意见回复等。
a. 细胞样本经短暂4sU标记后立即收集,液氮速冻或直接进入分级分离流程,干冰寄送。
b. 不同类型样本推荐送样要求如下:
悬浮培养细胞系:≥1.0×10⁸ 细胞
果蝇 S2 等半贴壁细胞:≥6.0×10⁸ 细胞
贴壁培养细胞系:≥1.0×10⁸ 细胞
Q1:长度长新生RNA测序能不能分析eRNA?
可以检测,但不是其主要优势项。eRNA(增强子RNA)具有三个特点:长度短(通常<500 nt)、不经poly(A)加尾、丰度低。纳米孔直接RNA测序对200 nt以下短reads的比对准确率有限,eRNA片段难以获得稳定可靠的定量结果。若您的关注点是增强子转录活性与eRNA,建议以PRO-seq/PRO-cap为主要手段(短读长、单碱基分辨率、增强子检测灵敏)。
Q2:长度长新生RNA测序与短读长新生RNA测序(如SLAM-seq、PRO-seq)的主要区别是什么?
PRO-seq/PRO-cap回答"聚合酶在哪里转录、从哪里起始",SLAM-seq回答"RNA合成了多少、有多稳定",长读长测序则回答"一条正在合成的新生RNA上,哪些内含子先剪、哪些后剪、剪接与转录离得多远"——单分子水平的RNA加工动力学是其不可替代的价值。
Q3:为什么必须使用直接RNA测序,而不是长读长cDNA测序?
长读长cDNA测序依赖模板转换型反转录,反转录必须到达RNA 5′末端才能完成,短而已剪接的分子远比长而未剪接的新生RNA更容易完成这一过程,导致cDNA文库系统性高估共转录剪接——在cDNA数据中,Pol II尚未越过3′剪接位点100 bp时就检测到大量"已剪接"信号,甚至出现剪接发生在Pol II占位区内(物理上不可能)的假象。直接RNA测序不经反转录与扩增,文库操作步骤最少,最大程度保留了新生RNA群体的真实剪接状态。
Q4:能实现单基因或单内含子分辨率的剪接分析吗?
受当前纳米孔测序通量限制,每个样本可获得约65万(MinION)至110万(PromethION)条唯一比对reads,单个基因中位仅覆盖1-7条reads,因此整体分析以全基因组聚合的方式呈现剪接的"平均动力学";仅高表达基因可获得单基因水平的分析。