(一)技术简介
ChRO-seq(Chromatin Run-On and sequencing,染色质运行测序)是一项以染色质为起始材料的run-on类新生RNA测序技术。它在PRO-seq的基础上改进了起始材料制备策略:以NUN缓冲液分离的不溶性染色质(包含与DNA稳定结合的活性RNA聚合酶)替代完整细胞核进入run-on反应,从而绕开了PRO-seq对"获得高质量完整细胞核"的依赖,使新生转录组检测几乎适用于任何输入样本——新鲜或冻存的固体组织、临床穿刺样本,乃至RNA高度降解的组织。
ChRO-seq保留了run-on技术的全部核心优势:在run-on反应中,活跃延伸的RNA聚合酶将生物素标记的核苷酸(Biotin-NTPs)掺入新生RNA的3′末端,经链霉亲和素磁珠严格富集后从3′端测序,实现单碱基分辨率的RNA聚合酶定位,同时检测基因转录活性与增强子等非编码调控元件的活性。对于RNA严重降解的样本,还可采用其变体leChRO-seq(length extension ChRO-seq):先降解既有RNA,再以Biotin-rUTP与正常NTPs将残留在聚合酶上的降解RNA平均延伸约100 bp并从5′端测序,使存放数十年的组织样本也能获得可靠的转录图谱。
(二)实验原理及流程
ChRO-seq是一种基于染色质运行实验(Chromatin Run-On)的高通量测序技术。核心原理是:RNA聚合酶与DNA形成的转录复合物比RNA本身稳定得多,即使细胞死亡、RNA降解,已经结合并"卡"在染色质上的活性聚合酶仍然保留;使用NUN缓冲液(高盐、尿素、NP-40体系)可以高效分离不溶性染色质并去除可溶性杂蛋白与游离RNA,超声重悬后即可作为run-on反应的起始材料。在run-on反应中,无正常NTP存在时,聚合酶仅将1个(至多几个)生物素标记核苷酸掺入新生RNA的3′末端即停止延伸,既完成了新生RNA的亲和标记,又使测序reads的3′端精确对应聚合酶活性中心的位置,达到单核苷酸分辨率。
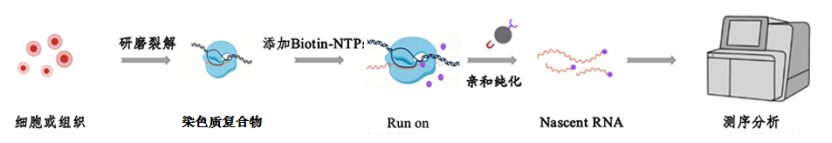
实验流程:
1. 样本制备与染色质分离:新鲜或冻存组织在液氮预冷的研磨器中粉碎(约100 mg),或收集培养细胞;加入NUN缓冲液剧烈涡旋,离心获得不溶性染色质沉淀,洗涤去除游离蛋白与RNA;使用超声打断仪对染色质沉淀进行超声处理,将其重悬为可反应的均一溶液,即run-on反应的输入材料;
2. 染色质run-on反应:加入含Biotin-11-CTP与Biotin-11-UTP的run-on缓冲液,37°C孵育5分钟,活跃聚合酶将生物素标记核苷酸掺入新生RNA的3′末端并随之终止;
3. RNA提取与片段化:Trizol LS提取RNA,碱水解(0.2 N NaOH冰上8分钟)将新生RNA剪切成40-100 nt,利于后续唯一比对;
4. 新生RNA富集:生物素标记的新生RNA结合链霉亲和素磁珠,经严格洗涤去除未标记背景RNA;
5. 接头连接与再次富集:新生RNA 3′端连接测序接头后二次上珠富集;随后用RppH去除5′帽子结构、PNK对5′端磷酸化,连接5′测序接头,并进行第三次链霉亲和素富集;
6. 反转录与文库构建:反转录生成cDNA后进行文库PCR扩增,按Illumina平台流程完成文库构建与高通量测序;
7.数据分析:将reads的3′端(ChRO-seq)比对至参考基因组,生成链特异性的聚合酶活性图谱,开展基因转录定量、调控元件鉴定、差异分析及调控网络构建等下游分析。
(三)分析内容
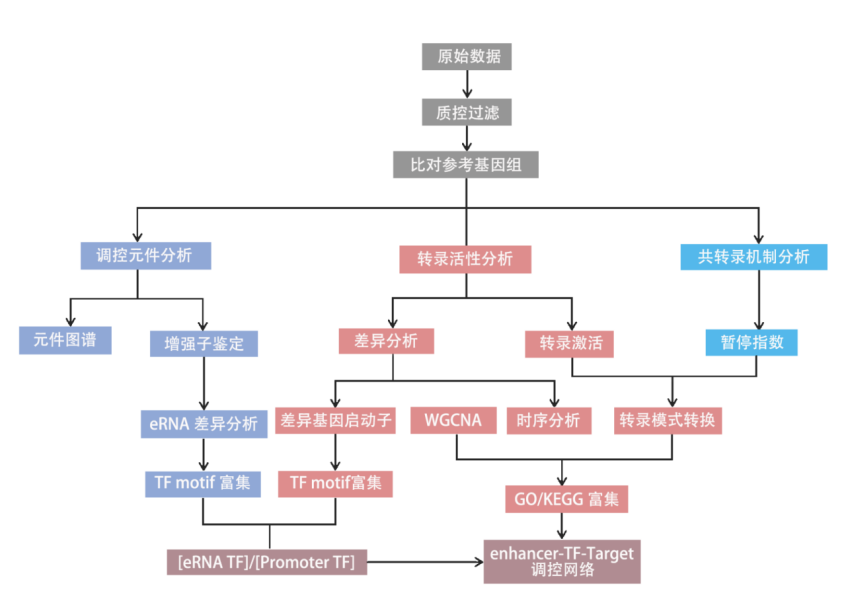
1. 基因转录活性分析:质控后的reads比对参考基因组并过滤rRNA比对,生成链特异性覆盖度信号;以注释TSS下游500 bp至基因末端的区间计数定量基因转录活性(避开启动子近端暂停峰的干扰),并进行样本间/组间转录活性差异分析;
2. 调控元件分析:基于新生RNA在启动子与增强子处的特征性起始信号,利用dREG/dREG-HD算法在全基因组范围鉴定活性转录调控元件(TRE),绘制元件图谱、完成增强子鉴定,并进一步开展增强子eRNA差异分析与TF motif富集分析;
3. 转录活性分析:对差异转录基因进行GO/KEGG通路富集、WGCNA共表达模块、时序分析等多维度挖掘,并可通过暂停指数(PI)分析基因的转录状态分类与转录模式转换;
4. Motif与网络分析:对差异启动子与差异增强子区域分别进行转录因子motif富集,筛选显著富集的转录因子,关联其潜在靶基因,构建"转录因子—增强子—靶基因"候选调控网络。
(四)主要应用方向
1. 固体组织与临床样本的新生转录组研究:对新鲜冻存组织、临床穿刺样本乃至RNA严重降解的组织直接进行新生转录检测,绘制肿瘤原发组织、罕见临床样本的转录与调控图谱;
2. 增强子与超级增强子(enhancer hotspot)鉴定:通过eRNA与调控元件活性信号鉴定活性增强子,进而定义肿瘤或发育过程中特异激活的增强子簇(超级增强子),锚定关键致病通路与候选靶基因;
3. 肿瘤分子分型与关键转录因子挖掘:基于增强子"指纹"比对样本与组织来源,识别肿瘤特异激活的调控程序,鉴定驱动疾病亚型、关联临床预后的核心转录因子及其靶基因;
4. 发育与分化调控研究:在干细胞定向分化等模型中刻画启动子与增强子活性的动态变化,发现阶段特异性分子标记与增强子热点,构建谱系形成与区域特化的转录调控网络。
(五)技术优势
1. 起始材料宽松,不依赖完整细胞核:以染色质替代细胞核进入run-on反应,从根本上绕开了PRO-seq"获得高质量完整细胞核"这一最大瓶颈,固体组织、冻存组织均可直接建库。
2. 耐受RNA降解样本:RNA聚合酶-DNA复合物远比RNA稳定,即使样本RIN=1.0、组织存放30年,leChRO-seq仍能产出可靠的转录图谱,是RNA-seq(通常要求RIN≥2)无法覆盖的场景。
3. 单碱基分辨率、链特异性:reads末端精确对应聚合酶活性中心,可分辨重叠基因、可变启动子的精细转录位置并明确转录方向。
4. 一次检测多层调控信息:同时定量基因转录活性、非编码RNA(lncRNA、miRNA主转录本)与增强子eRNA活性,检出大量RNA-seq无法发现的调控元件。
5. 无需免疫沉淀:不依赖抗体特异性和交联效率,避免了ChIP类方法中抗体差异带来的批次效应。
(六)深碳优势
1. 实验流程自主研发,染色质级run-on建库体系成熟,ChRO-seq与PRO-seq、PRO-cap可按样本类型灵活组合、联合分析。
2. 不限物种及组织类型,非模式物种与降解样本执行经验丰富,已开展包括人、鼠、猴子、牛、拟南芥、小麦、芒果、油松、鱼、虾、贝等十余种动植物项目。
3. 分析体系完善,涵盖基因转录定量、调控元件图谱、增强子热点、转录状态分类与三元调控网络,提供全面的分析结果与多组学联合应用分析。
4. 文章级全流程服务,包括一对一方案讨论及制定、检测数据解读、个性化分析、验证方案、审稿意见回复等。
(七)送样建议
a. 组织或细胞液氮速冻后干冰寄送。
b. 不同类型样本推荐送样量如下:
动物组织: ≥100mg
植物组织: ≥1g
细胞: ≥1.0 x 10^6
(八)常见问题FAQ
Q1:ChRO-seq与PRO-seq有什么异同?
相同点:
相同点:两者同属run-on类新生RNA测序技术,核心反应完全一致——以Biotin-NTPs掺入新生RNA的3′末端并终止延伸,经链霉亲和素磁珠多轮严格富集后建库测序;同为单碱基分辨率、链特异性、无需免疫沉淀的新生RNA检测技术,均可同时定量基因转录活性与增强子等调控元件活性。
不同点:
1. 起始材料不同:PRO-seq分离完整细胞核进入run-on反应;ChRO-seq则用NUN缓冲液分离不溶性染色质(含与DNA结合的活性聚合酶),超声重悬后进入run-on反应,绕开了对完整细胞核的依赖。
2. 适用样本不同:PRO-seq适合培养细胞、新鲜样本等易于获得高质量细胞核的体系;ChRO-seq将适用范围扩展至固体组织、冻存组织及临床样本——这也是两者最核心的区别。
3. 对RNA降解的耐受不同:PRO-seq仍要求样本具备一定RNA与核完整性;ChRO-seq因起始材料是聚合酶-DNA复合物,天然耐受RNA降解,其变体leChRO-seq更可对RIN=1.0的存放30年archived组织完成可靠的转录检测。
简单理解:PRO-seq与ChRO-seq回答同一个问题——"RNA聚合酶正在哪里转录";区别仅在于PRO-seq从完整细胞核出发,ChRO-seq从染色质出发,因此更适合组织样本与RNA降解样本。
Q2:RNA降解严重的样本能做ChRO-seq吗?
可以,这正是ChRO-seq区别于RNA-seq和PRO-seq的核心优势。RNA聚合酶与DNA形成的转录复合物比RNA分子本身稳定得多,即使RNA已完全降解,结合在染色质上的活性聚合酶仍然保留。对于RNA中度降解的样本可直接开展ChRO-seq;对于RNA严重降解的archived样本(如石蜡保存、长期冻存的临床组织),推荐采用leChRO-seq方案:先降解残留RNA片段,再利用活性聚合酶将降解的新生转录本平均延伸约100 bp,恢复可用于唯一比对的长度。文章报道使用RIN=1.0、存放30年的胶质母细胞瘤组织验证了leChRO-seq的可行性。
(一)转录图谱分析
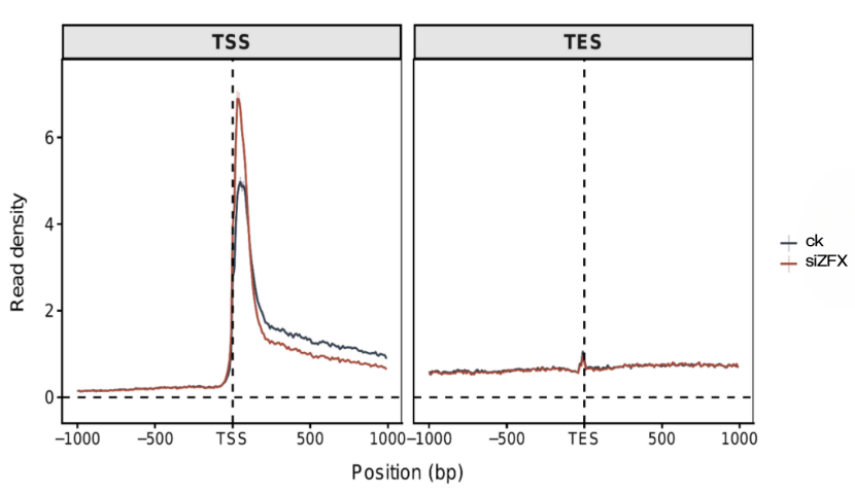
生成链特异性的聚合酶活性覆盖度信号,在注释转录起始位点(TSS)与转录终止位点(TES)区域展示转录信号的聚集特征:TSS处呈现启动子近端暂停峰,基因体呈连续延伸信号,反映基因的整体转录活性;通过比较不同样本或处理组的信号分布,评估转录活性的全局变化。
(二)转录活性与转录状态分析
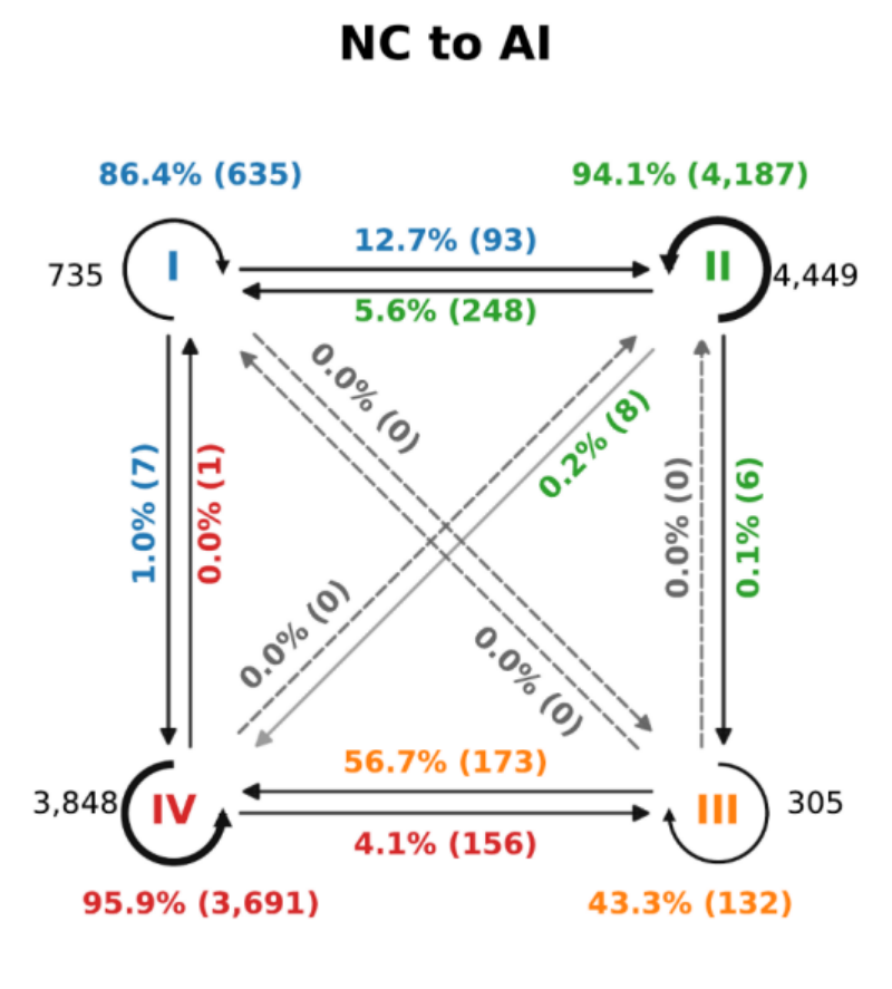
基于基因转录活性与暂停指数(PI)两项指标,将基因转录状态划分为Type I(活跃且非暂停)、Type II(活跃且暂停)、Type III(非活跃且暂停)、Type IV(非活跃且非暂停)四种类型,分析不同样本或处理条件下基因转录调控所处的状态。
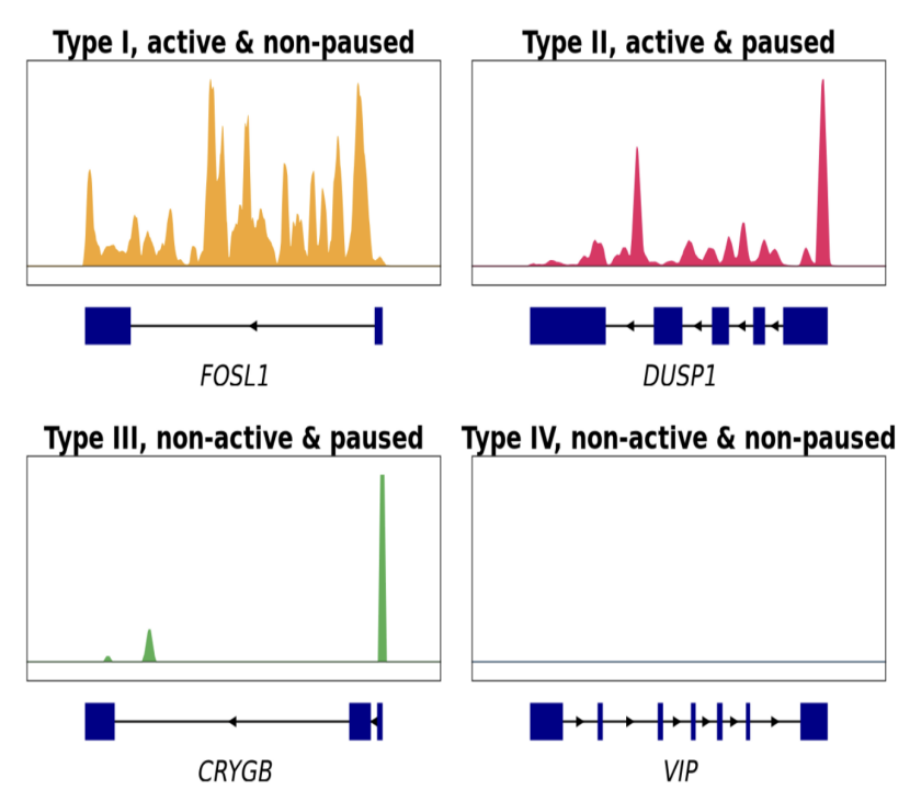 对两个处理组之间基因转录状态的转换路径进行统计与可视化,量化各状态间的迁移比例,鉴定发生"激活(暂停释放)""抑制(进入暂停)"等模式转换的基因集合,揭示转录调控发生的具体环节。
(三)差异转录分析
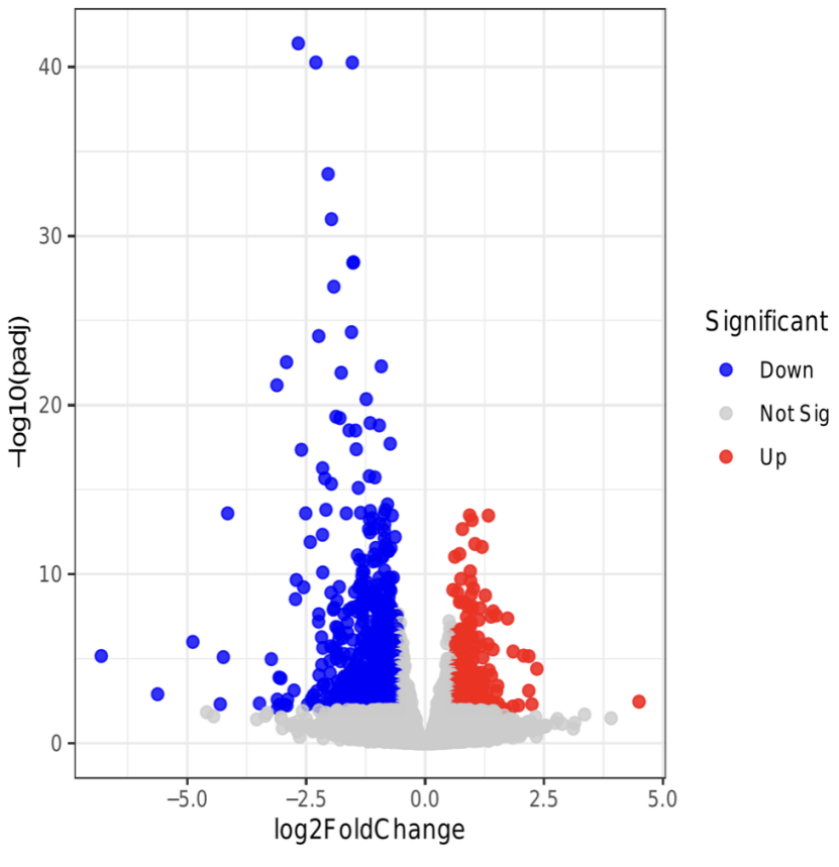
筛选不同处理组之间差异转录的基因与差异活跃的调控元件,以火山图等形式展示差异倍数与显著性;对差异基因及差异增强子相关基因进行GO/KEGG通路富集,挖掘其参与的生物学过程。
(四)差异区域联合Motif分析
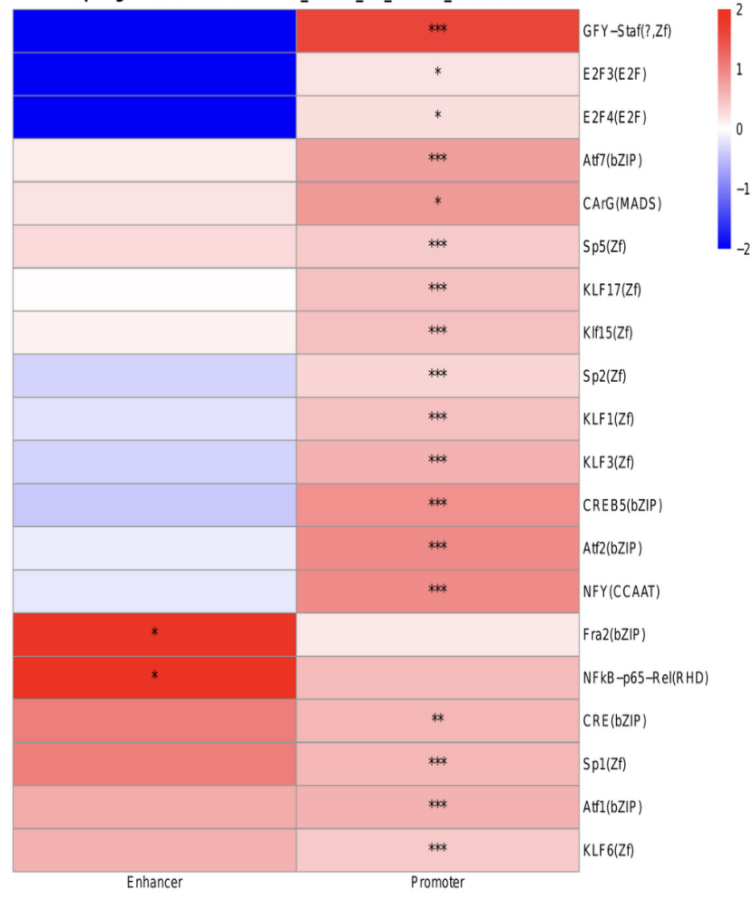
对差异启动子区域与差异增强子区域分别进行转录因子Motif富集分析,筛选显著富集的转录因子并以热图展示各motif在不同差异区域中的富集程度,推测上游转录因子及其调控方向。
(五)转录因子-增强子-靶基因网络分析
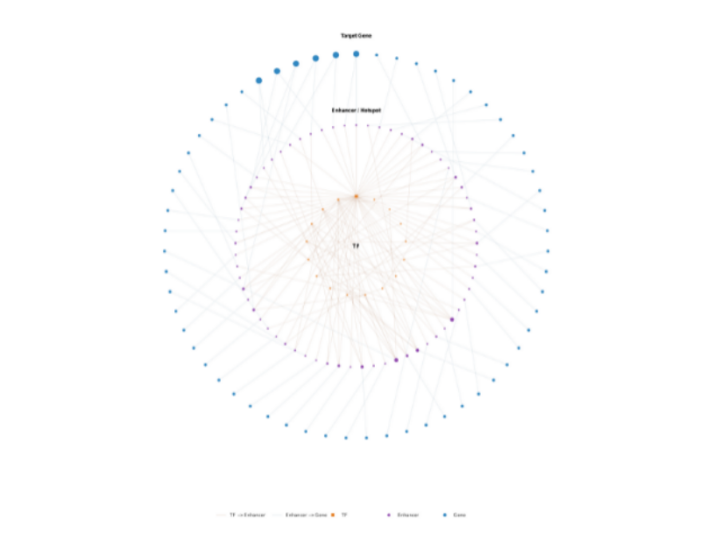
整合转录活性、调控元件活性与Motif富集结果,分析转录因子、增强子、靶基因之间的调控关系,构建"转录因子—增强子—靶基因"调控网络,筛选其中高置信调控关系,形成可视化网络图,深入解析核内转录调控机制。
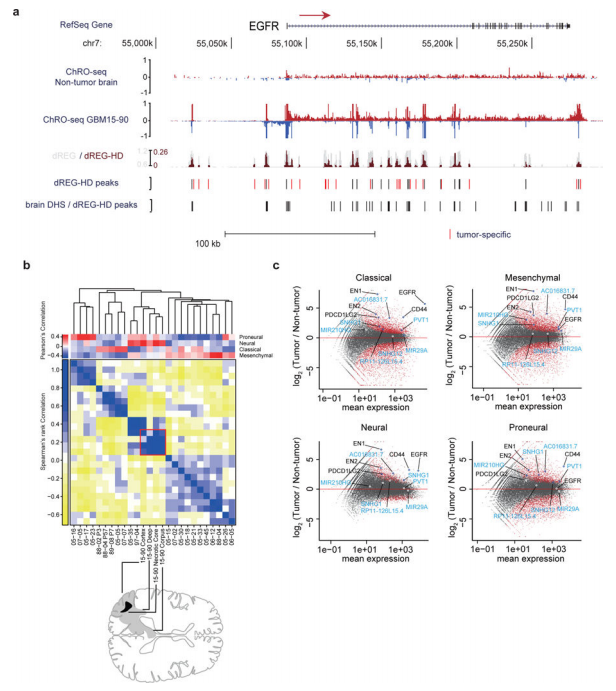
案例1:ChRO-seq绘制胶质母细胞瘤的转录调控景观图谱
期刊:Nature Genetics
研究背景:胶质母细胞瘤(GBM)是最具侵袭性的脑肿瘤,基因表达层面的异质性已有较多刻画,但驱动恶性表型的增强子景观与核心转录因子仍不清楚。新生RNA测序技术(如PRO-seq)对起始材料要求苛刻——需要高质量的完整细胞核,难以直接应用于临床肿瘤组织。ChRO-seq正是为突破这一瓶颈而开发:以染色质为起始材料,几乎适用于任何样本。
研究目的:验证ChRO-seq/leChRO-seq技术的可靠性,并以其绘制原发GBM的新生转录图谱,解析肿瘤特异增强子、调控程序与关键转录因子。
实验设计:对20例原发GBM、3例病人来源异种移植模型(PDX)及1例非肿瘤脑组织开展ChRO-seq/leChRO-seq检测(测序深度平均3,300万唯一比对reads/样本);以Jurkat细胞系平行开展ChRO-seq与PRO-seq验证技术一致性;利用dREG-HD鉴定活性转录调控元件(TRE),通过增强子"指纹"与216个参考组织进行比较;鉴定肿瘤特异TRE(taTRE)并聚类其调控程序,进而开展motif富集、靶基因关联与生存分析。
主要结果:
1. 技术可靠性:Jurkat细胞系中ChRO-seq与PRO-seq基因体转录相关系数R=0.98、暂停信号R=0.96;leChRO-seq在RIN=1.0、存放30年的GBM组织中产出与新鲜样本一致的转录图谱,证明RNA降解不是障碍。
2. GBM与正常脑的转录差异:共鉴定2,381个差异转录基因与1,123个差异转录ncRNA,涉及细胞周期、DNA复制(肿瘤中上调)与神经系统稳态(下调)等过程,并检出多个促增殖lncRNA(PVT1、SNHG1等)。
3. 增强子"指纹"揭示组织来源:每个肿瘤96%的TRE在参考组织的DNase开放位点中有对应开放信号,增强子景观与正常脑组织高度相似(如GBM-15-90中86%的TRE与脑组织共享),提示原发肿瘤保留了其起源细胞的调控印记,这一相似度显著高于GBM细胞系。
4. 三种恶性调控程序:肿瘤特异激活的TRE(taTRE)富集于三类调控程序——类干细胞程序(与胎儿神经组织重叠)、支持细胞分化程序(星形胶质细胞、内皮细胞等)与免疫程序,并分别由不同的转录因子家族驱动(POU家族、AP-1/TEAD家族、C/EBP/NF-κB家族等)。
5. 核心转录因子与临床预后:在间质型GBM中,C/EBP、RARG与NF-κB(RELA)共同激活一组共享靶基因(44个),显著关联不良预后(如CCL20、ADM),靶基因富集于免疫与应激反应通路,为靶向治疗提供候选。
案例2:ChRO-seq揭示纤维板层肝癌中异常增强子活性热点与候选治疗通路
期刊:Cell Reports
研究背景:纤维板层肝癌(FLC)是一种好发于青少年、缺乏标准治疗方案的罕见肝脏肿瘤,约80%以上患者携带DNAJB1-PRKACA融合基因。虽然FLC的基因表达谱已有刻画,但其染色质调控景观、肿瘤特异增强子及最关键的生存依赖基因仍不清楚。
研究目的:利用ChRO-seq绘制FLC原发组织的新生转录与增强子景观,鉴定FLC特异的增强子热点及其关联基因,并探索可转化的治疗策略。
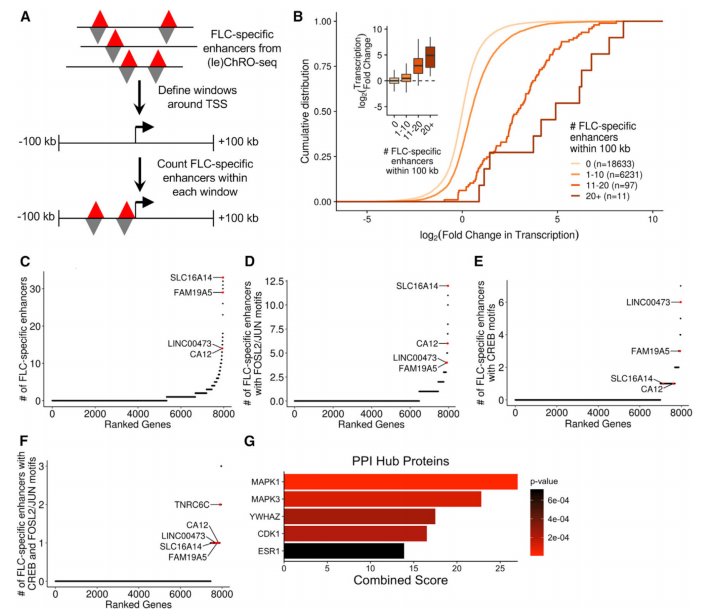
实验设计:对14例FLC原发组织与3例配对非肿瘤肝组织开展(le)ChRO-seq检测(平均约1,790万比对reads/样本);利用dREG共鉴定153,478个活性TRE,通过DESeq2差异分析鉴定FLC特异TRE;对FLC特异增强子进行motif富集、增强子—靶基因关联(100 kb窗口内增强子活性与基因转录相关性)及增强子热点(analogous to super-enhancer)鉴定;最后联合细胞模型开展药敏与功能验证。
主要结果:
1. 增强子活性比基因表达更能区分肿瘤与正常:基于远端增强子活性的聚类可完全区分FLC与非肿瘤肝组织,其分层能力优于基因体转录、mRNA与miRNA表达谱,凸显增强子水平的细胞特异性。
2. FLC特异增强子景观:共鉴定6,824个FLC特异激活TRE,其motif显著富集AP-1(FOSL2/JUN)与CREB家族——二者均为MAPK信号通路的下游效应因子;38.2%的FLC特异增强子含FOSL2/JUN motif。
3. 增强子热点锚定关键基因:定义了141个FLC特异增强子热点,关联基因显著富集MAPK/ERK通路;SLC16A14、CA12、LINC00473等基因携带最高密度的FLC特异增强子,其中CA12在正常肝中呈"聚合酶暂停、蓄势待发"状态,而SLC16A14位点在正常肝中完全沉默、在FLC中被彻底重编程激活。
4. 治疗策略验证:MEK抑制剂cobimetinib可降低FLC细胞模型活力;SLC16A14敲低或CA12抑制(SLC-0111)单独即可降低细胞活力,且与cobimetinib联用呈显著协同效应(组合指数CI<1),为FLC提供了"MAPK抑制+代谢靶点抑制"的组合治疗候选方案。
案例3:ChRO-seq解析人类早期小肠发育的染色质调控动态
期刊:Nucleic Acids Research(2021)
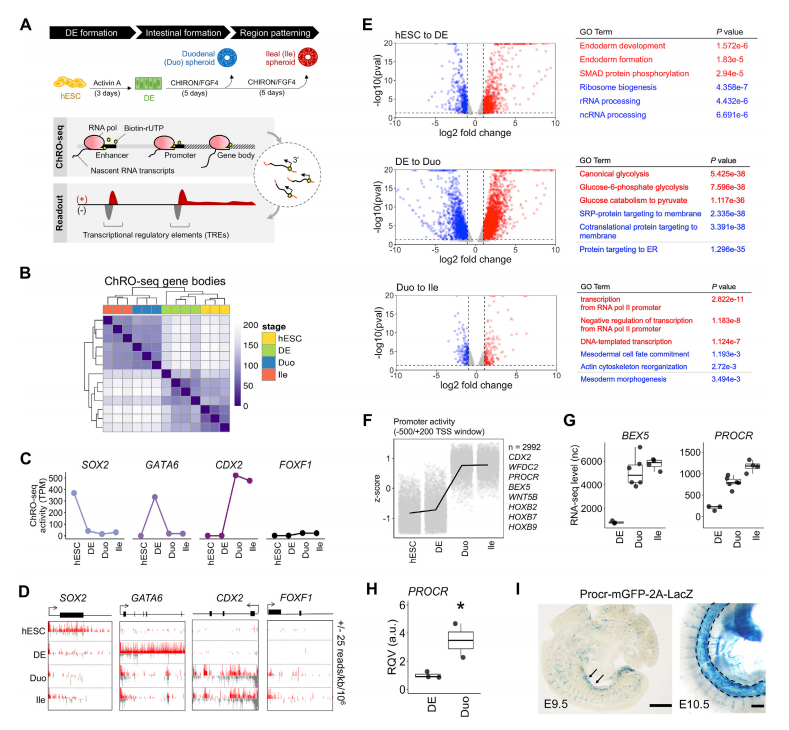
研究背景:人类胚胎期小肠谱系建立与区域模式化(十二指肠 vs 回肠)的染色质调控动态几乎无人知晓——由于难以获取早期人类胎儿组织,既往认识主要依赖动物模型。多能干细胞(hPSC)定向分化模型可在体外重演"hESC → 定型内胚层(DE)→ 十二指肠球体(Duo)→ 回肠球体(Ile)"的谱系发生过程,为研究提供了理想体系。
研究目的:利用ChRO-seq在人类定向分化模型中首次系统刻画小肠谱系形成与区域特化过程中的启动子、增强子与基因转录动态,构建相关转录调控网络。
实验设计:对hESC、DE、Duo球体、Ile球体四个阶段(ChRO-seq各n=3-4)开展新生转录检测;联合匹配的RNA-seq数据鉴定各阶段特异性分子标记;分析各阶段启动子活性动态、阶段特异性增强子及增强子热点;对HOX基因簇开展新生转录动态与转录因子网络分析,并用人类胎儿小肠单细胞RNA-seq数据(孕11、14、19周)进行独立验证。
主要结果:
1. 基因转录的阶段动态:共鉴定三个转换节点(DE形成、小肠谱系形成、回肠模式化)中数千个差异转录基因;SOX2、GATA6、CDX2等经典标记的阶段特异性得到验证,且球体模型几乎不表达间充质标记FOXF1,证实其上皮属性的纯净。
2. 启动子活性与阶段标记:9,550个基因的启动子活性在阶段间显著变化,其中2,992个基因在小肠球体阶段启动子显著激活(如BEX5、PROCR),并通过RT-qPCR与小肠发育时期小鼠报告基因染色独立验证,确认球体模型忠实地重演早期小肠发育特征。
3. 阶段特异性分子标记:整合ChRO-seq与RNA-seq,鉴定出各阶段在转录与稳态表达双重水平的特异性标记(hESC:POU5F1、SOX2;DE:NODAL、SOX17、EOMES、LEFTY2;小肠球体:CDX2;并发现HES4、FOXA1、WFDC2、FJX1、IGF2等新标记)。
4. HOX基因簇的独特激活模式:十二指肠球体激活HOXA/C/D簇3′端基因,回肠球体则激活各簇5′端基因,呈现严格的位置信息式(colinear)激活;CDX2、HOXA11、PITX1与HOXC9等转录因子与该过程关联,且这一模式在人类胎儿小肠scRNA-seq数据中得到独立验证,提出了小肠区域特化的新型调控工作模型。
参考文献:
1. Chu T, Rice E J, Booth G T, et al. Chromatin run-on and sequencing maps the transcriptional regulatory landscape of glioblastoma multiforme [J]. Nat Genet, 2018, 50(11): 1553-1564.
2. Dinh T A, Sritharan R, Smith F D, et al. Hotspots of aberrant enhancer activity in fibrolamellar carcinoma reveals candidate oncogenic pathways and therapeutic vulnerabilities [J]. Cell Rep, 2020, 31(2): 107509.
3. Hung Y H, Huang S, Dame M K, et al. Chromatin regulatory dynamics of early human small intestinal development using a directed differentiation model [J]. Nucleic Acids Res, 2021, 49(2): 726-744.

