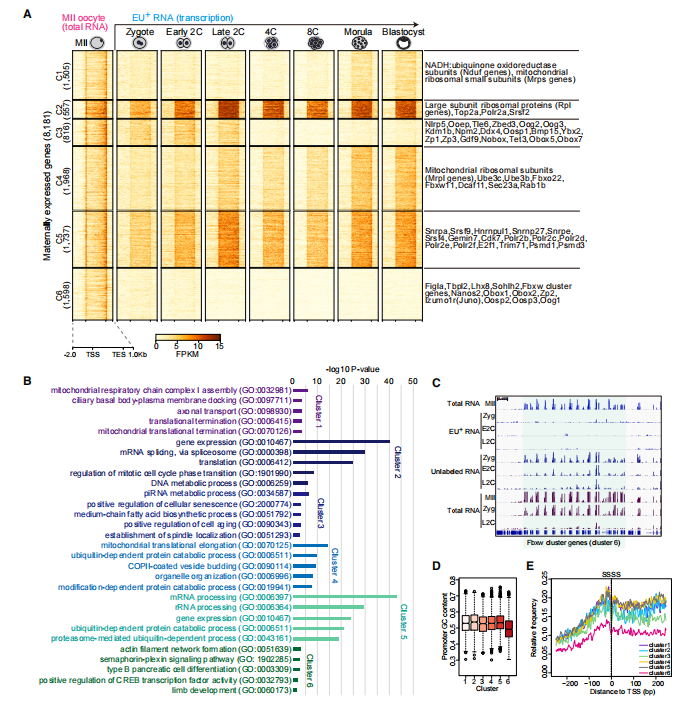
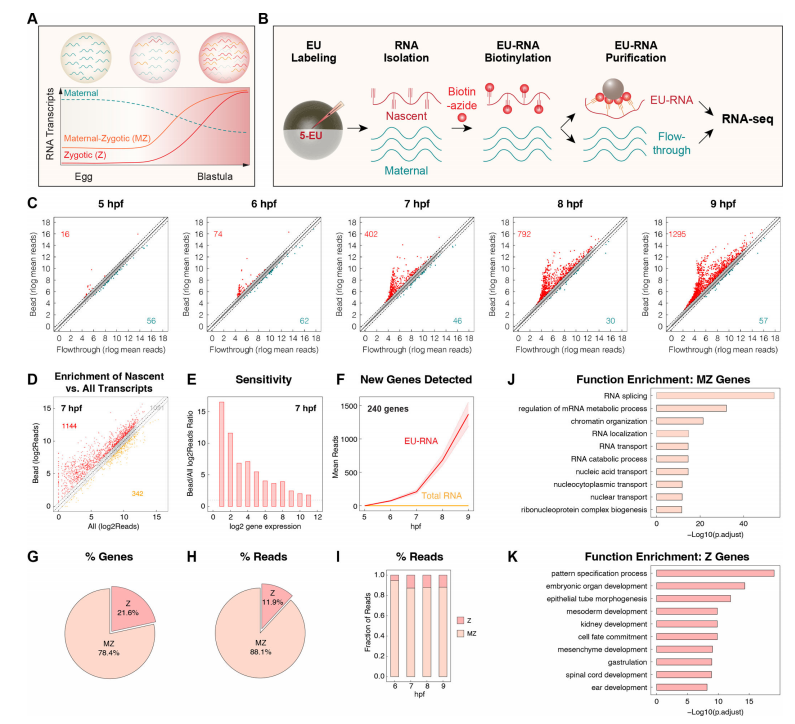
LET-seq(Low-input EU-labeled Total RNA sequencing,低起始量EU标记全转录组测序)是一种基于5-乙基尿苷(5-Ethynyl uridine,EU)代谢标记的新生RNA检测技术,专为早期胚胎等样本量极度有限、新生RNA丰度极低的场景优化。
其核心思路是:在活细胞或胚胎培养体系中加入EU,活跃转录的RNA聚合酶会将EU直接掺入新合成的RNA;随后通过click化学反应给EU+ RNA接上生物素,用链霉亲和素磁珠把"标记时间窗内新合成的RNA"从海量既有RNA中物理富集出来,再基于全转录组建库策略进行测序。LET-seq兼具三大特点:极低样本起始量(经验证100个细胞即可建库,早期胚胎2-5枚/样本即可获得可靠数据)、全转录组覆盖(不依赖poly(A),同时捕获非polyA化与未成熟的新生转录本)、一份样本两种信息(富集沉淀为EU+新生RNA,上清为既有RNA,可平行建库互为对照)。该技术为合子基因组激活(ZGA)等依赖珍贵微量样本的转录调控研究提供了此前缺失的工具。
LET-seq是一种基于代谢标记与亲和富集的新生RNA测序技术。核心原理是:5-EU作为尿苷类似物,可在转录过程中被RNA聚合酶直接掺入新合成RNA的尿嘧啶位置;EU携带的乙炔基在固定透化后的样本中可通过click化学反应与叠氮-生物素(Azide-PEG3-biotin)共价连接,从而给"标记窗口内合成的新生RNA"打上高亲和力生物素标签;链霉亲和素磁珠即可将EU+新生RNA与未标记的既有RNA(如母源储存RNA、稳态成熟RNA)物理分离,实现新生转录组的特异性检测。
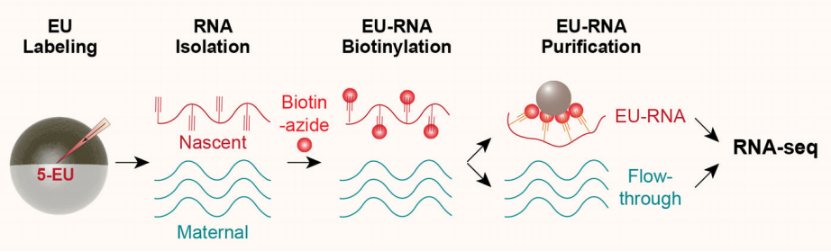
实验流程:
1. 样本准备与EU代谢标记:将细胞或早期胚胎置于含EU(1 mM)的培养体系中孵育特定时间窗口(如胚胎3小时、细胞1小时),活跃转录的聚合酶将EU掺入新合成RNA;标记剂量与时长经优化后不影响胚胎后续发育;
2. 固定与透化:4%多聚甲醛固定,Triton X-100透化,为click反应创造条件;
3. Click反应:在CuSO₄/THPTA催化体系与抗坏血酸钠还原体系存在下,Azide-PEG3-biotin与EU的乙炔基发生click反应,使EU+新生RNA带上生物素标签;
4. 链霉亲和素磁珠富集:样本裂解后,生物素标记的EU+ RNA结合链霉亲和素磁珠,经多级盐浓度缓冲液严格洗涤去除未标记背景RNA;磁珠上清(未标记的既有RNA)保留,可平行建库;
5. 磁珠上直接建库:富集后的EU+ RNA不经洗脱纯化,直接以磁珠悬液为起始,采用全转录组建库策略(Smart-seq stranded体系)反转录与扩增,同步加入外源参考RNA用于跨样本定量校正;
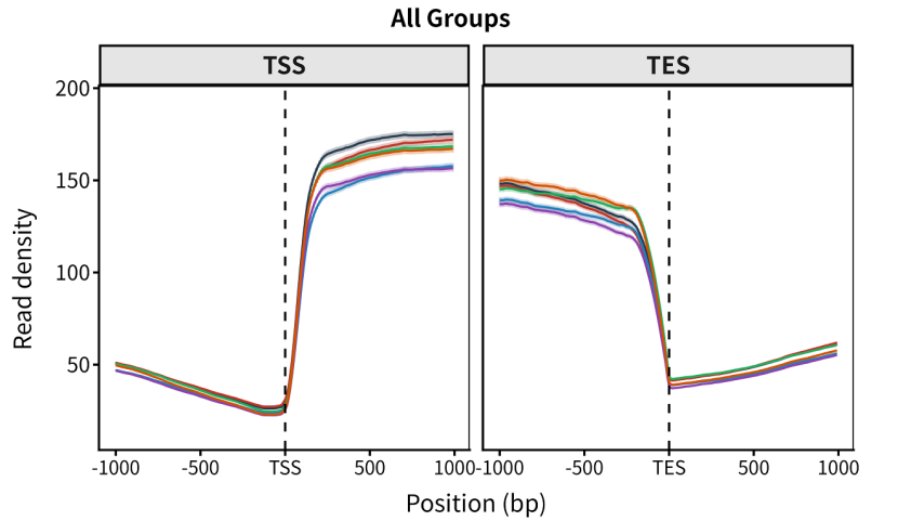
6. 高通量测序与数据分析:双端测序后,去除rRNA比对,将唯一比对reads映射至基因体(基因体定量可同时涵盖外显子与内含子信号,充分反映新生RNA特征),开展新生转录定量、剪接调控、eRNA与增强子等下游分析。
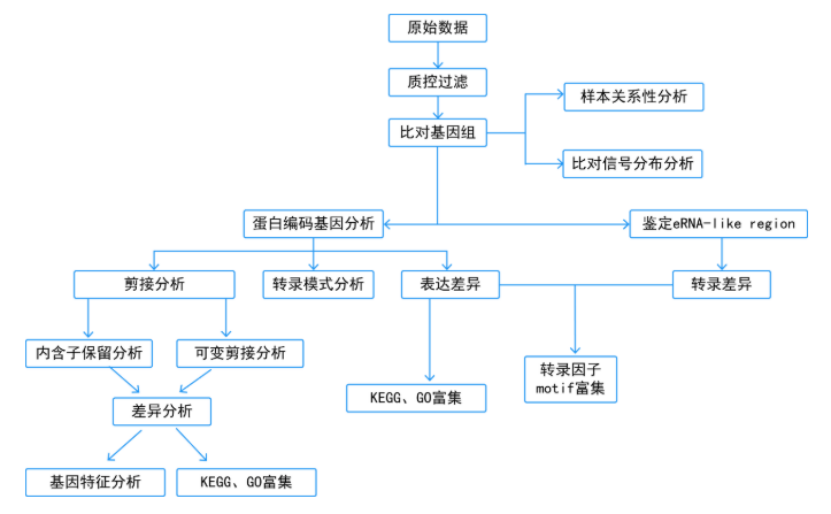
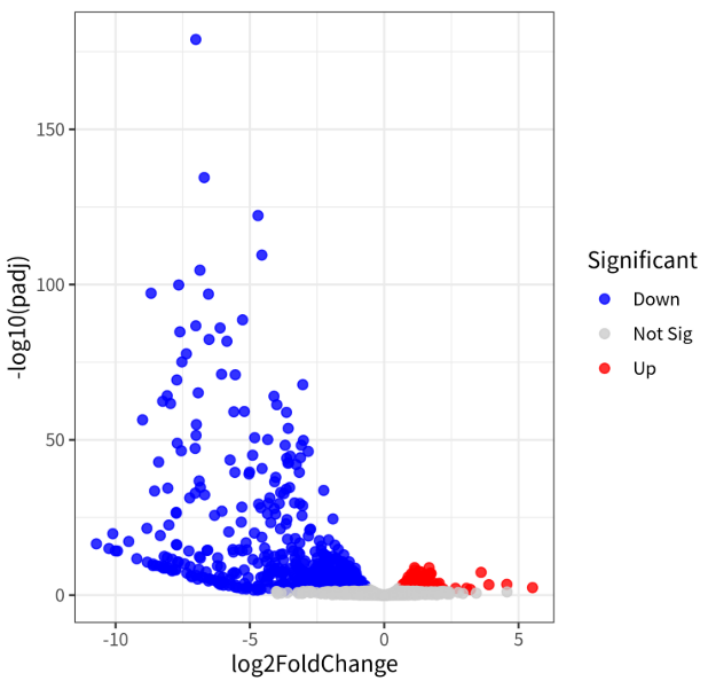
1. 新生转录组分析:对唯一比对reads进行基因体水平转录定量(TPM),评估不同样本或处理组间的即时转录活性;筛选差异转录基因并进行GO/KEGG通路富集,挖掘新合成RNA层面的调控变化;
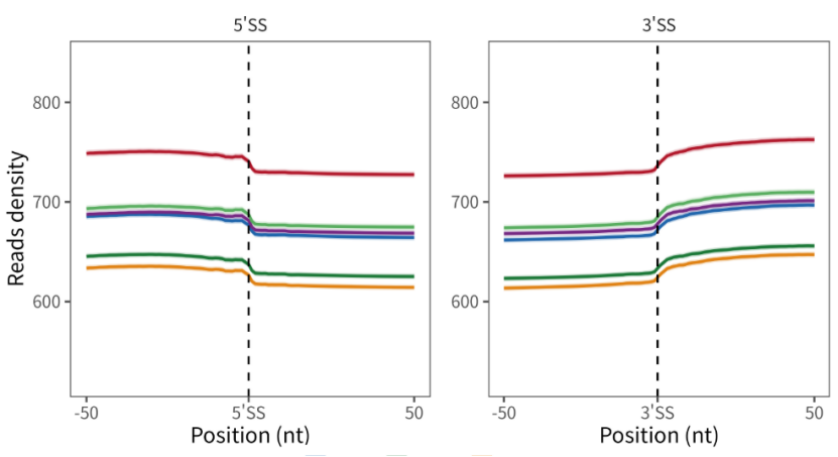
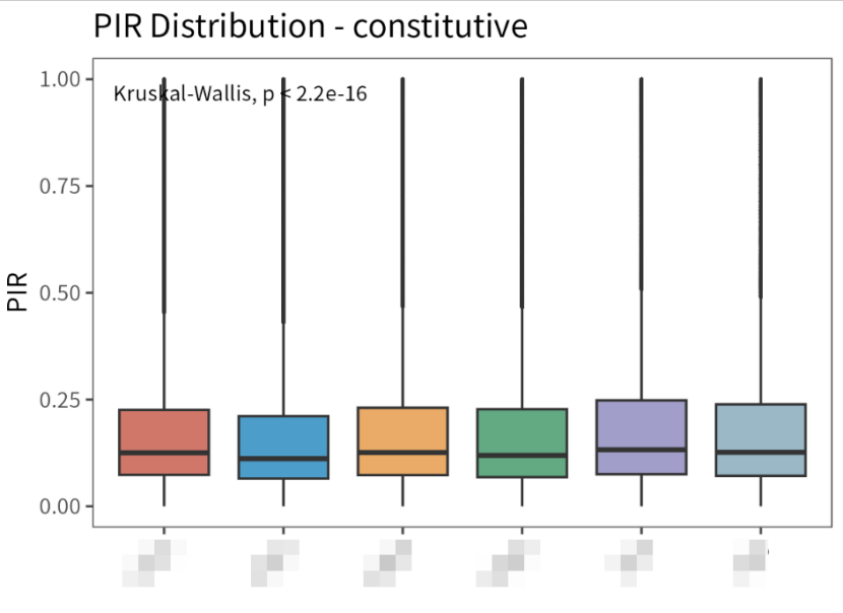
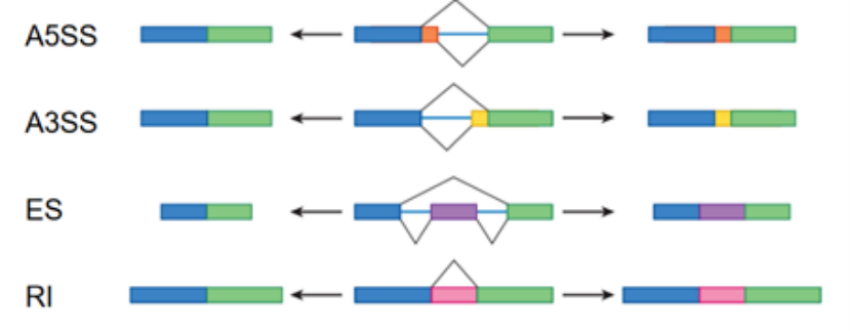
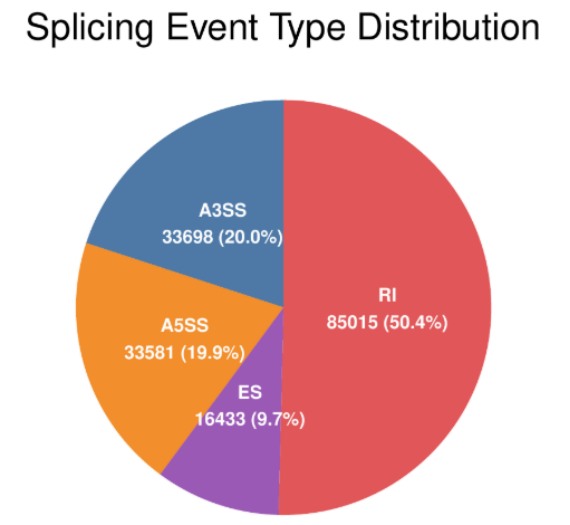
2. 剪接调控分析:新生RNA保留大量内含子信号,可据此开展剪接图谱分析(剪接位点前后信号可视化)、内含子保留率(PIR)统计与组间比较、可变剪接事件分析(A5SS/A3SS/外显子跳跃ES/内含子保留RI四类),揭示共转录剪接的动态过程;
3. eRNA与增强子分析:检测基因间区的新生RNA信号,鉴定eRNA-like region并评估增强子活性,分析不同处理组间增强子活性的差异;
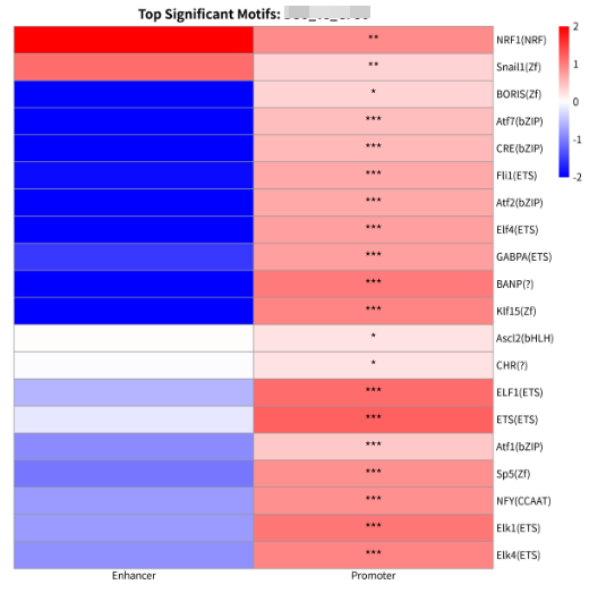
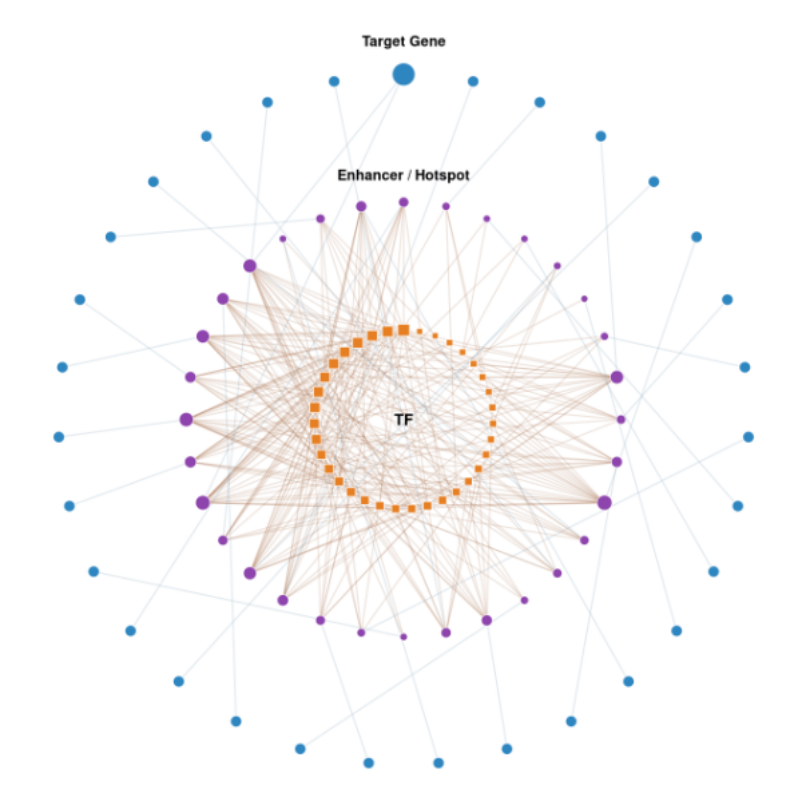
4. Motif与网络分析:对差异基因启动子区域与差异增强子区域分别进行转录因子motif富集,筛选显著富集的转录因子,关联其潜在靶基因,构建"调控元件—转录因子—靶基因"候选调控网络。
1. 早期胚胎与合子基因组激活(ZGA)研究:胚胎样本量以枚计、新合成RNA被海量母源RNA掩盖,是ZGA研究的两大难题;LET-seq以2-5枚胚胎/样本的起始量特异性富集新生RNA,精确刻画ZGA的时序动态与转录重编程;
2. 稀缺样本与低起始量新生转录组:干细胞亚群、稀有限制性细胞群、显微解剖区域等难以获得大量材料的场景,LET-seq提供低至百个细胞级的检测能力;
3. 即时转录响应与直接调控靶点鉴定:捕捉药物、刺激或基因扰动后标记窗口内的新生转录变化,区分直接转录效应与稳态间接变化;
4. 共转录剪接与RNA加工动态:基于新生RNA丰富的内含子信号,分析剪接效率、内含子保留与可变剪接事件的动态变化(如胚胎发育中剪接效率的阶段性跃迁);
5. 增强子活性与eRNA检测:通过基因间区新生RNA信号与eRNA-like region鉴定,描绘活性增强子图谱并分析其活性差异。
1. 极低样本起始量:经验证100个细胞即可成功建库,早期胚胎2-5枚/样本即可产出可靠数据,是微量珍贵样本新生转录组研究的利器。
2. 特异性捕获新合成RNA:EU标记+click生物素化+链霉亲和素多级严格洗涤,将检测对象严格限定在标记窗口内合成的RNA。
3. 全转录组覆盖,不依赖poly(A):基于全转录组建库策略,同时捕获polyA与非polyA、成熟与未成熟(含内含子)的新生转录本,尤其适合RNA加工不成熟的场景(如合子期)与共转录剪接研究。
1. 实验流程自主研发,代谢标记+亲和富集体系成熟稳定,有效捕获微量样本中的新生RNA。
2. 不限物种及组织类型,胚胎、稀有细胞等低起始量样本执行经验丰富,已开展包括人、鼠、猴子、牛、拟南芥、小麦、芒果、油松、鱼、虾、贝等十余种动植物项目。
3. 分析体系完善,涵盖新生转录定量、剪接调控、eRNA与增强子活性以及三元调控网络,提供全面的分析结果与多组学联合应用分析。
4. 文章级全流程服务,包括一对一方案讨论及制定、检测数据解读、个性化分析、验证方案、审稿意见回复等。
a. 组织或细胞液氮速冻后干冰寄送;胚胎等活样本请与我们提前沟通培养与标记方案。
b. 极低起始量场景(早期胚胎、稀有限制性细胞群等):LET-seq最低可支持约100个细胞/样本建库。此类项目建议提供尽可能多的生物学重复,标记时窗、培养条件等细节欢迎与我们一对一讨论。
Q1:LET-seq与SLAM-seq有什么区别?
相同点:两者同属代谢标记类新生RNA检测技术,都是在活细胞中用核苷类似物(LET-seq用5-EU,SLAM-seq用4sU)标记标记时间窗内新合成的RNA,从而将新生RNA与既有RNA区分开。
不同点:
1. 区分机制不同:SLAM-seq依赖4sU经化学处理引起的T→C碱基转换,测序后通过碱基变化"数"出新生RNA;LET-seq则通过click反应给EU+ RNA接上生物素,用链霉亲和素磁珠把新生RNA物理富集出来。
2. 文库类型不同:SLAM-seq通常在poly(A)+ mRNA层面分析;LET-seq基于全转录组建库,同时捕获非polyA化与未成熟(含内含子)的新生转录本,更适合RNA加工不成熟的场景(如合子期)以及剪接调控研究。
3. 起始量不同:LET-seq专为极低输入优化,100个细胞、2-5枚胚胎即可建库;SLAM-seq常规方案对起始样本量要求较高。
4. 功能侧重不同:SLAM-seq擅长Pulse-Chase设计下的RNA半衰期与周转动力学定量;LET-seq聚焦标记窗口内的新生转录组分析。
5. 操作复杂度不同:SLAM-seq标记后直接提RNA加化学转换,流程更简单;LET-seq需固定透化、click反应与亲和富集,步骤更多,但对胚胎等珍贵微量样本更友好。
简单理解:SLAM-seq靠"碱基转换"在测序数据里识别新RNA,擅长RNA生命周期动力学;LET-seq靠"生物素富集"把新RNA物理抓出来,擅长极低起始量样本的新生转录组分析。
Q2:LET-seq怎么做到极低样本起始量的?
LET-seq的低起始量能力来自方法学上的一系列设计:
1. 原位标记、原位反应:EU直接加在活细胞/胚胎培养液中完成掺入,click反应在固定透化后的细胞/胚胎内原位进行,全程不需要先提取大量总RNA;
2. 磁珠上直接建库:富集后的EU+ RNA不经洗脱与再次纯化,直接以磁珠悬液(约7 µL)为起始进行反转录与建库,避免了皮克级RNA在抽提、沉淀、转移环节的损失;
3. 全转录组建库策略:采用适配低输入的全转录组建库体系,无需poly(A)富集与大体积rRNA去除操作,反应体系天然适配微量模板;
4. 两步PCR扩增:通过优化的一扩、二扩循环数组合,保证百细胞级模板的文库产出与复杂度;
5. 实际效果:100个小鼠胚胎干细胞即可成功建库;早期胚胎2-5枚/样本即可获得与需百万级细胞的Bru-seq高度一致的新生转录谱(r>0.86),生物学重复间r>0.91;
Q3:LET-seq能不能研究eRNA?
可以。eRNA由活跃增强子转录产生,具有无poly(A)尾、丰度极低、半衰期短三大特点,常规RNA-seq很难捕获。LET-seq的两个特性恰好匹配这些难点:其一,全转录组建库不依赖poly(A),理论上可收录无polyA尾的eRNA;其二,EU标记+亲和富集把检测窗口限定在标记时段内新合成的RNA,天然放大"刚刚转录出来"的短寿命信号。分析体系中配套eRNA-like region鉴定与增强子活性差异分析模块,可进一步开展增强子—靶基因关联与motif分析。
需要说明的是:eRNA信号本身较弱,在胚胎等低起始量项目中检出受标记窗口内总转录量与测序深度的影响,建议适当提高测序深度;如需单碱基分辨率的增强子转录起始定位,可与PRO-seq、PRO-cap等聚合酶定位技术联合验证。