(一)技术简介
scSLAM-seq(single-cell SLAM-seq,单细胞新生RNA测序)是一项将RNA代谢标记与高通量单细胞转录组测序深度整合的时间分辨转录组技术。通过在活细胞培养体系中掺入4-硫代尿苷(4sU)标记正在合成的RNA,并借助化学转换使新合成RNA在测序数据中呈现特异的T-to-C碱基转换,scSLAM-seq能够在单个细胞内对数千个基因同时区分"新生RNA(new RNA)"与"既有RNA(old RNA)",一次实验平行获得新生、既有与总RNA三套转录组数据。
标准scRNA-seq捕获的只是细胞内RNA积累的"稳态快照",新生与既有RNA混在一起,无法回答"基因表达是刚刚发生的变化,还是早已存在的积累"。scSLAM-seq为单细胞转录组加上了时间维度:它能捕捉稳态RNA容易被稀释或掩盖的瞬时转录响应(分钟至小时级),并结合UMI分子标签精确计算每个细胞、每个基因的新生RNA比例(NTR),是研究细胞异质性背后转录动态调控的有力工具。
(二)实验原理及流程
scSLAM-seq的核心原理是代谢标记+化学转换:活细胞培养体系中加入4sU后,RNA聚合酶在合成RNA时会随机掺入4sU,因此标记窗口内新合成的RNA均带有4sU标签;随后利用化学转换反应修饰4sU,使其在反转录后被读作胞嘧啶(C),测序数据中新合成RNA即呈现特异性的T-to-C转换,而已存在RNA保持原有碱基组成。结合微流控单细胞捕获与UMI分子标签,并利用统计校正模型处理4sU掺入不完全造成的"漏标",即可在单细胞水平精确定量每个基因的新生RNA比例。
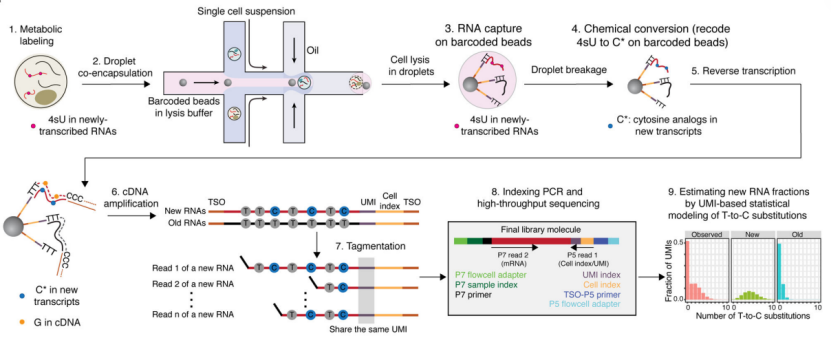
实验流程:
1. 4sU代谢标记:在活细胞培养基中掺入4sU(标记时间0.5-2小时),标记窗口内新合成的RNA带上4sU标签;
2. 单细胞悬液制备:对培养细胞直接收集或对组织进行解离获得单细胞悬液;
3. 微流控液滴封装:单细胞与带细胞条形码和UMI的oligo-dT引物磁珠共包裹于纳升级液滴中,细胞内mRNA被磁珠原位捕获;
4. 磁珠上化学转换:破乳收集磁珠后,对汇集磁珠进行一锅法化学转换反应,将捕获mRNA中的4sU转化为胞嘧啶类似物,实现新生RNA的"编码"标记;
5. 逆转录与二链合成:模板转换反应合成cDNA并引入通用扩增序列,随机引物二链合成反应回收截短cDNA;
6. cDNA扩增与建库:PCR扩增全长cDNA后经Tagmentation片段化,连接测序接头构建3′端测序文库;
7. 高通量测序:Illumina平台双端测序,完整保留新生RNA的T-to-C转换信息与细胞条形码/UMI信息;
8. 数据分析:检出UMI级T-to-C转换位点、扣除本底转换并进行统计校正,将每个UMI判定为新生或既有,最终输出每个细胞的两套数字表达矩阵(新生RNA矩阵与既有RNA矩阵)。
(三)分析内容
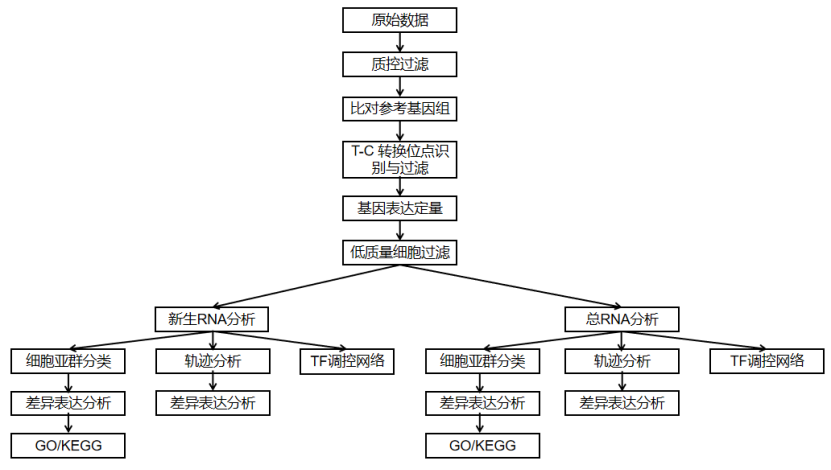
1. 新生RNA识别与定量:对测序数据完成细胞条形码/UMI校正与比对后,检出各转录本上的T-to-C转换位点,在UMI水平判定每个转录分子的新生/既有身份,计算细胞水平与基因水平的新生RNA比例(NTR),输出新生、既有、总RNA三套定量矩阵;
2. 转录活跃度分析:在细胞分群图上叠加每个细胞的新生RNA比例,鉴定转录活跃的细胞亚群;比较不同样本、处理组或时间梯度下各亚群的转录活跃度与组成变化,追踪转录动态的时间轨迹;
3. 新旧RNA差异与功能富集:分别基于Total/New/Old RNA三套矩阵开展差异表达分析,比较三者揭示的生物学差异;对差异基因进行GO/KEGG富集与基因模块分析,挖掘药物处理、外界刺激或状态转换中的直接响应通路;
4. 动态轨迹与调控网络:基于新生RNA开展拟时序分析,预测细胞状态转变方向;结合SCENIC等转录因子调控子推断方法,在新生RNA水平构建时间分辨的转录因子调控网络;
(四)主要应用方向
1. 药物处理与外界刺激的即时转录响应:区分直接转录响应与继发的稳态RNA变化,捕捉容易被普通RNA-seq稀释的早期响应基因,并定位响应来自哪一类细胞亚群;
2. 病毒感染与宿主-病原互作:同步追踪病毒基因与宿主基因的转录动态,鉴定支持病毒复制的易感细胞状态与限制感染的细胞状态;
3. 胚胎发育与干细胞命运转换:在稀少、瞬态的细胞群体(如2C样干细胞、早期胚胎细胞)中解析RNA合成与降解的协同调控策略,挖掘命运转换的关键调控因子;
4. 神经元激活等快速生理响应:解析神经元激活后数分钟至数小时内活性调控基因的细胞类型特异性诱导及转录因子调控子活性的时间动态;
5. 肿瘤耐药与细胞异质性:在耐药演进过程中识别具肿瘤干细胞特征的耐药亚群、耐药相关的即时转录程序及可干预的联合用药靶点;
6. 时间分辨RNA速率与细胞命运预测:基于实验直接定量的新旧RNA计算RNA速率,不受内含子reads稀疏限制,适用于快速动态过程的轨迹推断与命运预测。
(五)技术优势
1. 单细胞分辨率+时间维度双重视角
传统scRNA-seq只有"状态"信息没有"时间"信息,bulk SLAM-seq只有"时间"信息没有"细胞"信息。scSLAM-seq同时具备两者,能够回答"哪个细胞亚群在何时启动了哪组基因",揭示群体平均检测无法发现的稀少细胞亚群即时响应。
2. 一次实验平行获得三套数据
同一份样本、同一个细胞可平行获得新生RNA、既有RNA与总RNA三套转录组数据,无需分别开展多次实验即可解析RNA合成与降解的相对贡献,直接区分转录调控与转录后调控。
3. 高通量、低成本
单次实验可分析约1,000至20,000个以上细胞,每个细胞的文库制备与测序成本不足0.5美元,适合大规模、多时间点、多处理组的动态研究设计。
4. 更精准轨迹分析
基于新生RNA的RNA速率直接利用实验准确定量的新旧转录本,时间尺度可精确至标记时长(分钟-小时级),不受基因内含子结构与reads稀疏限制,可捕捉Jun、Fos等短内含子即早基因驱动的快速转变。
(六)深碳优势
1. 单细胞新生RNA实验体系经验成熟,4sU标记、化学转换与统计校正全流程质控,标记效率与数据质量稳定。
2. 不限物种及组织类型,覆盖细胞系、原代细胞、类器官与动物组织,非模式物种项目经验丰富。
3. 分析体系完善,涵盖新生RNA定量、转录活跃度、新旧RNA差异、代谢标记版RNA速率与转录因子调控网络的全套时间分辨分析与多组学联合应用。
4. 文章级全流程服务,包括一对一方案设计(标记时间、时间梯度与分组设计)、检测数据解读、个性化分析、验证方案与审稿意见回复。
(七)送样建议
代谢标记环节需要活细胞参与,请优先保证样本新鲜度与细胞活性:
培养细胞(贴壁 / 悬浮):每样活细胞 ≥1×10⁵ 个,活性 ≥85%,4sU 标记 0.5-2 小时,标记期间避光
原代细胞 / 免疫细胞:每样活细胞 ≥1×10⁵ 个,活性 ≥85%,标记时间与浓度可依细胞类型优化
(八)常见问题FAQ
Q1:单细胞新生RNA测序与bulk SLAM-seq有什么区别?
两者的标记原理一致,均通过4sU代谢标记+化学转换在总RNA中识别新合成RNA,但检测尺度与回答的问题不同:bulk SLAM-seq检测整个细胞群体新旧RNA的平均比例,适合测定RNA半衰期、群体水平的合成/降解速率,但结果只是千万级细胞的"平均回答",无法定位响应来自哪类细胞;单细胞新生RNA测序则在单个细胞内区分新生与既有RNA,能够识别稀少细胞亚群的即时响应(如耐药亚群、病毒感染细胞、快速激活的神经元)、构建细胞类型特异的转录动态图谱,并基于UMI精确计算每个细胞的NTR。简言之,bulk SLAM-seq回答"整体上新旧RNA如何变化",单细胞新生RNA测序回答"哪个细胞在响应、响应什么"。
Q2:4sU标记会影响细胞状态和转录组数据质量吗?
影响很小。多项组织与细胞测试显示,0.5-2小时标记期间细胞活性下降有限;标记组与未标记组的转录组数据基本重合,RNA标记不会对细胞分群产生严重影响。同时,新合成RNA的T-to-C转换率约1.5%(培养版),显著高于其他类型本底转换,可特异性识别新生RNA。
Q3:与普通单细胞转录组测序(scRNA-seq)有什么区别?
普通scRNA-seq捕获的是细胞内已积累RNA的稳态快照,新生与既有RNA混在一起,既无法判断基因表达变化是"刚发生的转录激活"还是"早已存在的RNA积累",也容易遗漏被稳态RNA稀释的瞬时响应。单细胞新生RNA测序为转录组加上时间维度:直接测定标记窗口内刚合成的新RNA,能灵敏捕捉数分钟至数小时级别的早期应答(如即早基因),并能基于新旧RNA解析转录与降解的相对贡献。
Q4:新生RNA比例较低,会不会难以检测?
不会。一方面可通过延长标记时间提高检出:标记0.5小时新生RNA比例约4.5%,延长至2小时可达约20%;另一方面,内置的统计校正模型可处理4sU掺入不完全造成的"漏标"效应,准确区分新生与既有转录本;此外,随机引物二链合成反应可回收截短cDNA,使基因检出提升约2.2倍、UMI提升约4倍,充分保障低比例新生RNA的定量可靠性。
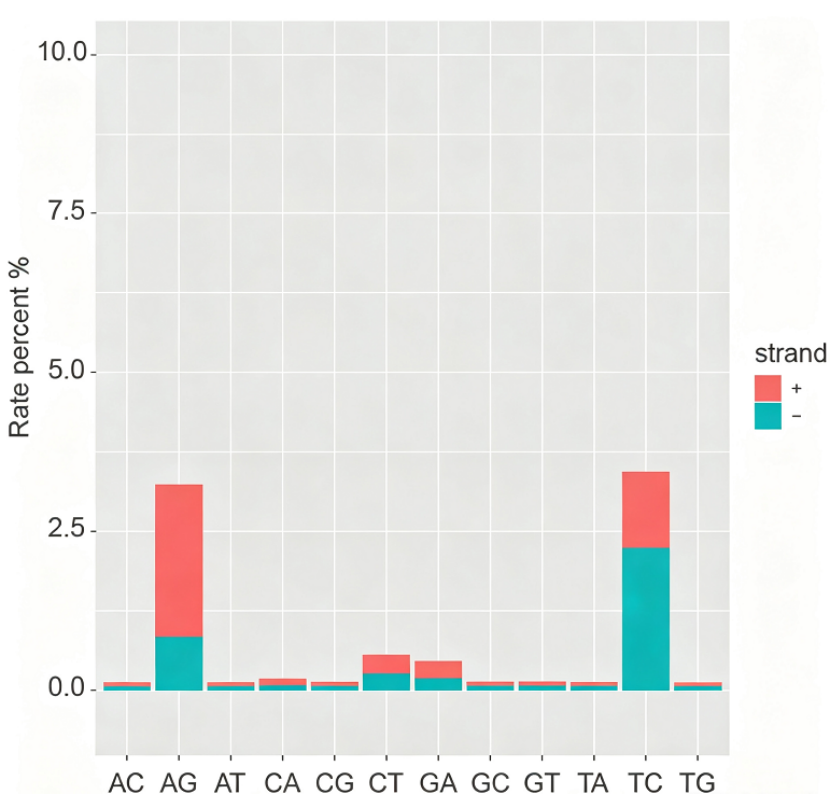
(一)新生RNA标记效率
统计各类型碱基转换的频率,评估4sU代谢标记的特异性。标记样本中T-to-C转换率显著高于其他类型转换及未标记样本的本底水平,证明新生RNA可被特异性识别,为后续定量分析奠定基础。
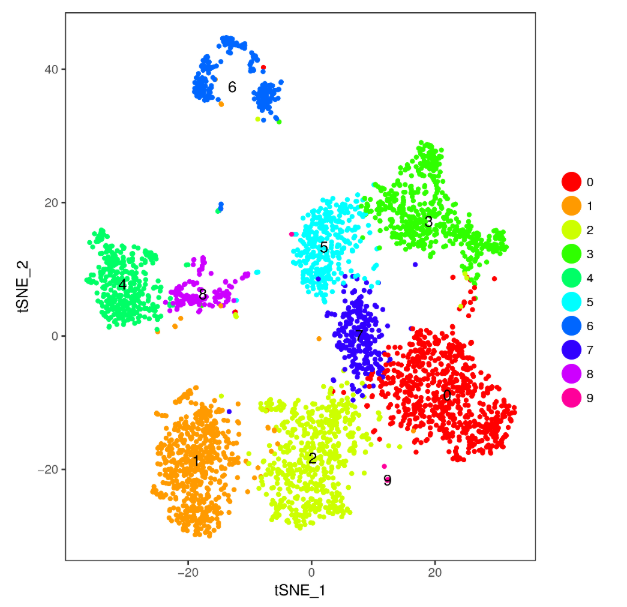
(二)细胞分群
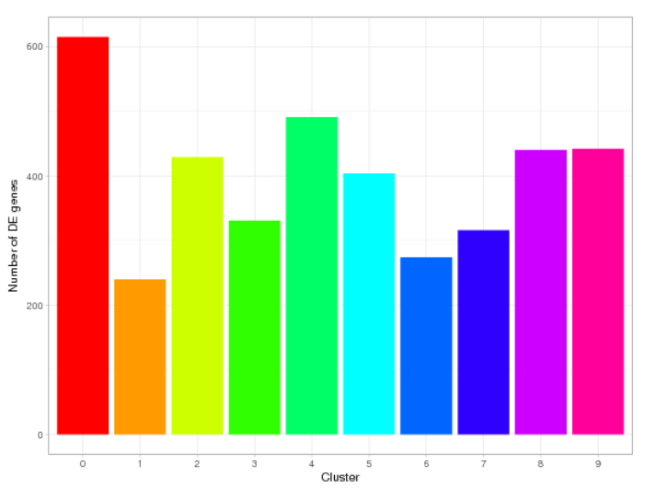
对过滤后的高质量细胞数据进行聚类分析,得到细胞亚群结果,并对不同细胞亚群差异基因进行分析。
(三)新生RNA比例
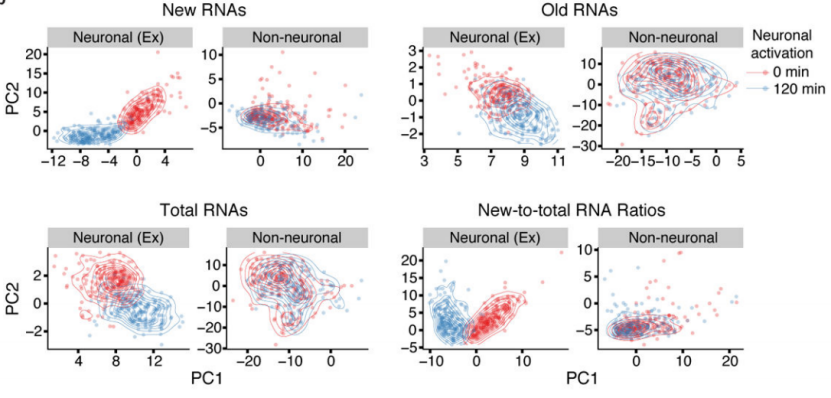
根据检测结果将RNA分为3类:新生RNA、旧RNA、总RNA,分别进行分析。
(四)轨迹分析
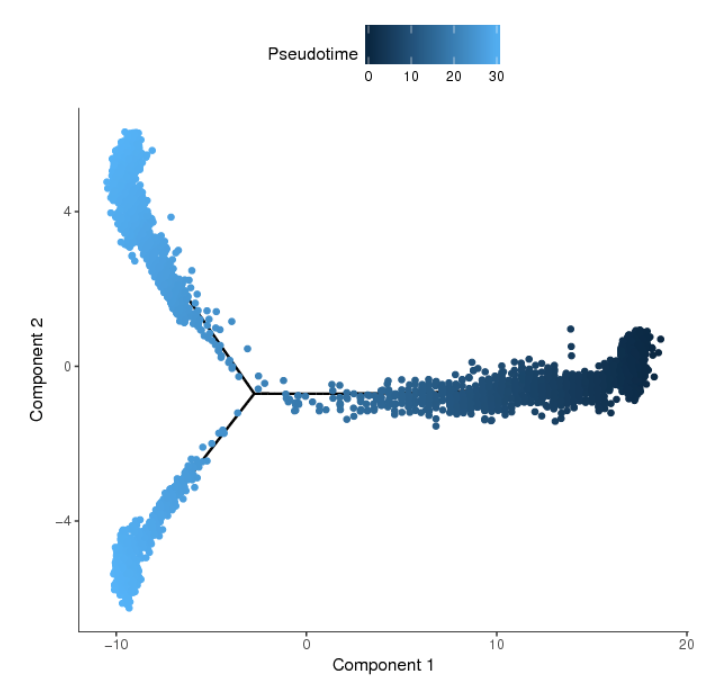
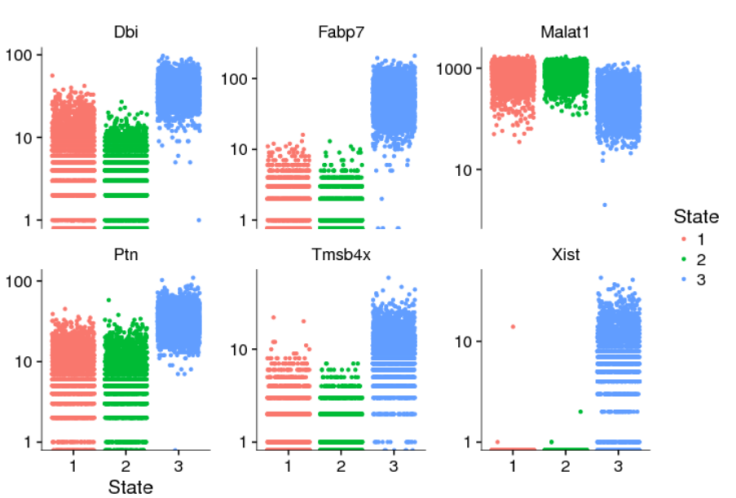
根据新生RNA表达变化趋势,进行细胞亚群轨迹分析,预测细胞动态变化过程,并分析不同分支差异基因及差异基因富集情况。
(五)TF调控网络
根据新生RNA检测的TF及靶基因,进行motif分析及相关性分析,构建TF调控网络。
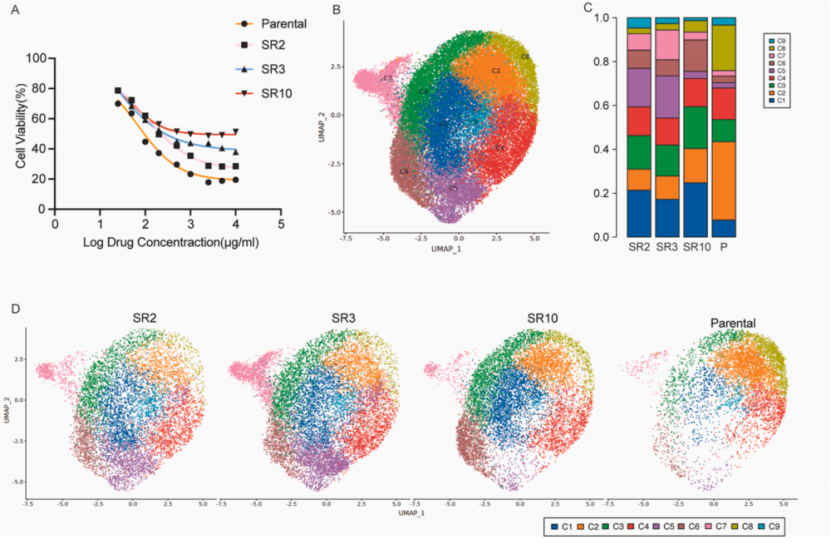
案例1:单细胞新生RNA测序揭示慢性髓系白血病塞利尼索耐药机制
期刊:International Immunopharmacology
研究目的:阐明慢性髓系白血病(CML)对核输出蛋白XPO1抑制剂塞利尼索(selinexor)产生耐药的细胞与分子机制,识别具肿瘤干细胞特征的耐药亚群,并探索克服耐药的联合干预策略。
实验设计:构建三株梯度耐药的K562细胞系(SR2/SR3/SR10,IC50依次升高)与亲本株平行比较;采用单细胞新生RNA测序标记新合成mRNA,在单个细胞内区分新生与既有RNA,共获得35,539个单细胞转录组;分别基于Total与New RNA矩阵开展细胞分群、差异表达、KEGG/GSVA富集、RNA速率拟时序、SCENIC转录因子分析与UCell基因集评分;结合Western blot、亚铁离子荧光检测及铁死亡诱导剂RSL3联合药敏实验进行验证。
主要结果:单细胞转录组揭示了耐药进程中的克隆演化:Cluster 1/3/5/6随耐药程度递增而持续扩增,Cluster 2/8逐渐减少,提示前者与耐药相关;新生RNA差异基因(MT-TW、DNAJB1、HSPB1等)更早提示热激蛋白应答与内质网蛋白加工通路的激活,而总RNA差异基因(MT2A、TFPI、MT-ND3、HMGCS1等)反映积累效应;Cluster 6的UCell肿瘤干细胞评分最高,且位于耐药发展的早期阶段,其新生RNA呈现自噬特征(NFE2L2、SQSTM1、BTG1上调);铁死亡相关分子随耐药进展持续下调,铁死亡抑制蛋白(FTH1、TFRC、GPX4、SLC7A11)在耐药组升高;铁死亡诱导剂RSL3与塞利尼索联用呈协同效应(HSA模型),可显著提高胞内亚铁离子水平并有效克服耐药。
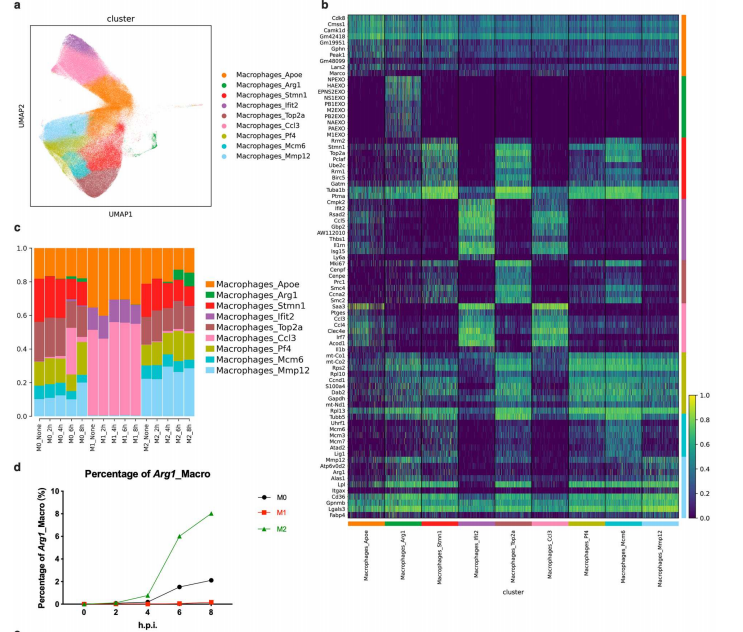
案例2:单细胞新生RNA测序解析流感病毒感染中巨噬细胞极化的转录动态
期刊:Emerging Microbes & Infections
研究目的:解析不同极化状态(M0/M1/M2)巨噬细胞感染甲型流感病毒(IAV PR8株)后的时间分辨转录动态,鉴定支持病毒复制的特定细胞状态,并阐明不同极化巨噬细胞抗原呈递能力的差异。
实验设计:小鼠骨髓来源巨噬细胞(BMDMs)经诱导分化为M0/M1/M2三种极化状态后感染PR8株(MOI=1);采用scSLAM-seq方法进行时间分辨单细胞测序:4sU代谢标记+碘乙酰胺化学转换,以T-to-C转换率在单碱基分辨率区分新旧RNA,覆盖感染后多个时间点;分析十个病毒基因片段(HA/NA/NP等)的转录动态与感染细胞比例,并解析宿主新生RNA应答与抗原呈递(常规呈递与交叉呈递)能力。
主要结果:不同极化状态的巨噬细胞对IAV感染呈现高度异质性:M2极化巨噬细胞中病毒基因转录水平最高、感染扩散率最高,而M1极化能够有效限制病毒复制;感染后6小时是病毒-宿主互作的关键时间点,M0/M1/M2宿主细胞的新生RNA合成在此同步达峰;病毒基因组片段呈现两组转录动力学——HA、NP、NS1、NEP(NS2)自感染后4小时快速上升后回落,而PA、PB1、NA于6小时达峰,提示病毒在易感细胞中优先合成并剪接NS片段;进一步分群鉴定出9个巨噬细胞亚群,其中仅Arg1_macrophage亚群(M2极化特异性扩增)支持PR8的复制,是建立病毒许可环境的唯一细胞状态;抗原呈递分析显示M1极化巨噬细胞(含肺泡巨噬细胞)具备更强的交叉呈递能力向CD8+ T细胞呈递外源抗原,且随CD8+ T细胞分化进展交叉呈递能力进一步增强。
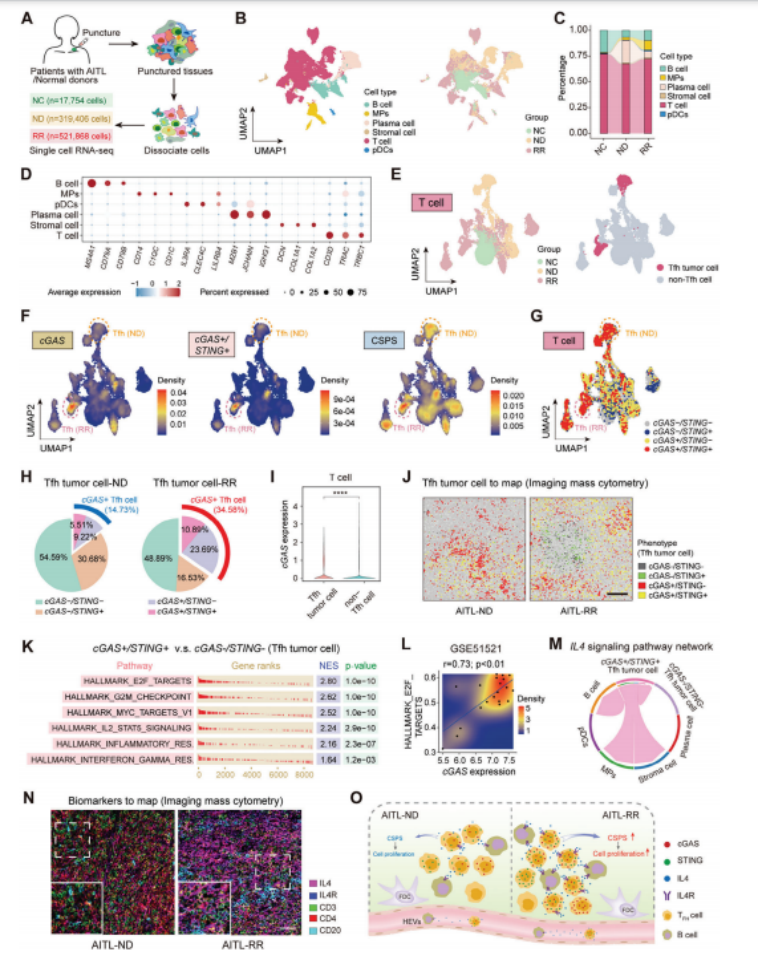
案例3:单细胞新生RNA测序指导"cGAS抑制剂+CLK1抑制剂"联合治疗策略
期刊:Advanced Science
研究目的:阐明cGAS-STING通路在外周T细胞淋巴瘤(PTCL)进展中的促瘤作用,解析cGAS抑制剂G150处理后残余肿瘤细胞的存活机制,寻找可增强靶向与化疗疗效的联合用药方案及疗效预测标志物。
实验设计:整合PTCL临床样本scRNA-seq、免疫荧光/免疫组化与细胞功能实验,鉴定cGAS-STING通路的表达异质性;采用单细胞新生RNA测序比较DMSO、G150及G150+CLK1抑制剂TG003三种处理后的转录动态,分别基于Total/New/Old RNA开展分群、拟时序、pySCENIC调控网络、CNV评分、组间距离与NTR分析;对ΔNTR(组间NTR差值)最大的前500个基因进行Metascape富集;进一步验证cGAS抑制剂与一线化疗药物(阿霉素、依托泊苷)的协同杀伤效应。
主要结果:cGAS-STING通路在PTCL中高表达且与增殖密切相关,Tfh样肿瘤细胞中cGAS+/STING+亚群显著富集E2F靶基因;单细胞动态分析显示,无论基于New、Old还是Total RNA,联合治疗组的转录谱距离均显著大于DMSO与G150组间的距离,且New RNA距离最长、Old RNA距离最短,表明联合处理引起的总RNA表达谱改变主要由新生RNA贡献;联合组细胞NTR显著低于DMSO与G150组,说明TG003直接抑制了新生RNA的合成;ΔNTR相关基因富集于细胞增殖与DNA修复通路,证明加入TG003增强了G150的杀伤效果;CLK1表达水平可作为cGAS抑制剂治疗获益的筛选指标;此外,化疗药物损伤DNA激活cGAS-STING通路,cGAS抑制剂与阿霉素/依托泊苷联用可协同抑瘤。
案例4:单细胞新生RNA测序分辨解析神经元激活与干细胞状态转换
期刊:Nature Methods
研究目的:建立高通量、UMI定量的单细胞代谢标记测序方法,在单细胞水平同时解析新生与既有转录组,揭示神经元激活及多能性-全能性状态转换过程中RNA调控的时间动态。
实验设计:基于Drop-Seq液滴微流控平台整合4sU代谢标记与磁珠上TimeLapse化学转换(TFEA/NaIO₄),并开发随机引物二链合成反应提升灵敏度;以原代小鼠皮层神经元KCl刺激(0/15/30/60/120分钟)与小鼠胚胎干细胞(mESCs)多能性-2C样状态转换为模型;结合pulse-chase实验测定RNA半衰期,利用dynamo计算代谢标记版RNA速率,SCENIC解析时间分辨的转录因子调控子活性。
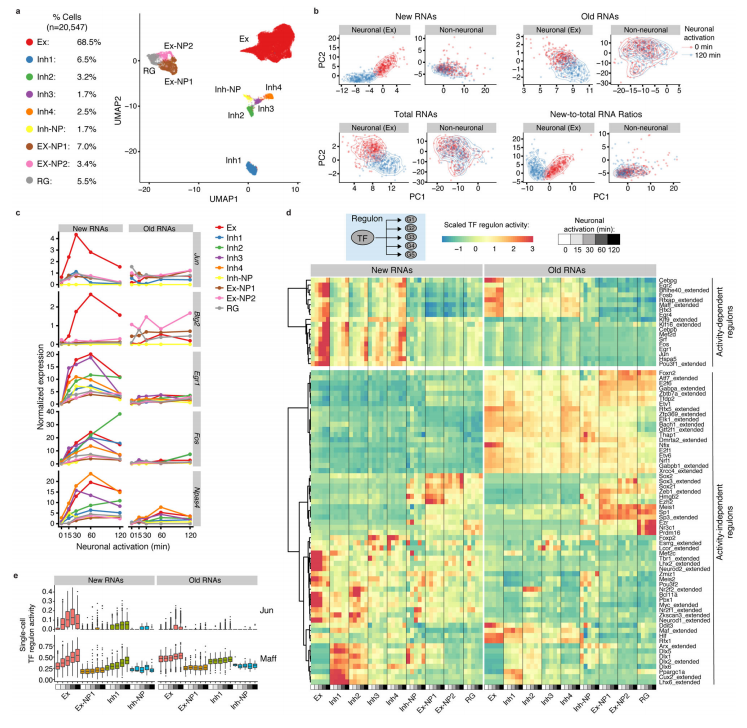
主要结果:一次实验平行解析约55,000个单细胞的新生/既有转录组;新生RNA(或NTR)可完全区分静息与激活状态的兴奋性神经元,而Total/Old RNA仅能部分区分,部分ARGs(Jun、Btg2)仅在兴奋性神经元中特异诱导且旧RNA水平几乎无变化;SCENIC在新生RNA中鉴定出18个活性响应调控子,Jun/Fos等即早转录因子及翻译后激活的Srf/Mef2调控子活性仅在新生RNA中显著上调;代谢标记版RNA速率准确重现神经元激活的两阶段转录动态(早期0-15分钟与晚期30-120分钟),突破了传统剪切版RNA速率对短内含子基因的失效;并揭示多能性-2C样转换中协同型、中性、去稳定型三类RNA调控策略;TET蛋白家族被鉴定为进入2C样态的表观遗传屏障。
参考文献
1. Cui Y, Li Y, Ji J, et al. Dynamic single-cell RNA-seq reveals mechanism of selinexor-resistance in chronic myeloid leukemia[J]. International Immunopharmacology, 2024, 134: 112212.
2. Yu J, Shang C, Deng X, et al. Time-resolved scRNA-seq reveals transcription dynamics of polarized macrophages with influenza A virus infection and antigen presentation to T cells[J]. Emerging Microbes & Infections, 2024, 13(1): 2387450.
3. Lu X, Wang S, Hua X, et al. Targeting the cGAS-STING pathway inhibits peripheral T-cell lymphoma progression and enhances the chemotherapeutic efficacy[J]. Advanced Science, 2024, 11: 2306092.
4. Qiu Q, Hu P, Qiu X, et al. Massively parallel and time-resolved RNA sequencing in single cells with scNT-Seq[J]. Nature Methods, 2020, 17(10): 991-1001.

